



MicroRNA-326-5p Protege Neurônios no AVC: Supressão do STAT3 Reduz Apoptose e Dano Mitocondrial
Resumo
Estudos exploraram extensivamente o papel de microRNAs (miRNAs) na lesão por isquemia/reperfusão cerebral (CI/RI). Mas o mecanismo específico do miR-326-5p na CI/RI ainda é elusivo. Portanto, este estudo visou desvendar o mecanismo do eixo miR-326-5p/transdutor de sinal e ativador de transcrição-3 (STAT3) na CI/RI. Dois modelos (privação de oxigênio e glicose [OGD] em neurônios corticais primários de rato e oclusão da artéria cerebral média [MCAO] em ratos Sprague-Dawley) foram estabelecidos para mimetizar CI/RI in vitro e in vivo, respectivamente. Ensaios de perda e ganho de função foram realizados com neurônios tratados com OGD e com ratos MCAO. Posteriormente, viabilidade, apoptose, estresse oxidativo e potencial de membrana mitocondrial em neurônios tratados com OGD foram testados, bem como alterações patológicas, apoptose e potencial de membrana mitocondrial em tecidos cerebrais de ratos MCAO. A expressão de Mitofusina-2 (Mfn2), miR-326-5p e STAT3 em neurônios tratados com OGD e em tecidos cerebrais de ratos MCAO foi detectada. Mfn2 e miR-326-5p foram reduzidos, e STAT3 foi elevado em neurônios tratados com OGD e tecidos cerebrais de ratos MCAO. O miR-326-5p alvo e regulou negativamente a expressão de STAT3. A restauração do miR-326-5p ou redução do STAT3 reforçou a viabilidade, inibiu apoptose e estresse oxidativo, aumentou o potencial de membrana mitocondrial e aumentou a expressão de Mfn2 em neurônios tratados com OGD. A up-regulação do miR-326-5p ou down-regulação do STAT3 aliviou alterações patológicas, inibiu apoptose e elevou o potencial de membrana mitocondrial e expressão de Mfn2 em tecidos cerebrais de ratos com MCAO. Este estudo elucida que miR-326-5p up-regulado ou STAT3 down-regulado protege contra CI/RI elevando a expressão de Mfn2.
Introdução
Lesão por isquemia/reperfusão cerebral (CI/RI) é um tipo de lesão cerebral seguida por acidente vascular cerebral isquêmico [1]. A característica mais marcante da I/R cerebral é a isquemia cerebral transitória inicial seguida de reperfusão [2]. CI/RI ativa apoptose neuronal e leva a danos hipocampais e corticais [3]. Atualmente, a aplicação clínica mais comum é trombolítica para CI/RI [4]. No entanto, a reperfusão aumentaria a produção de espécies reativas de oxigênio (ROS), levando a danos no DNA intracelular, danos relacionados ao estresse oxidativo, oxidação de proteínas e peroxidação lipídica, deteriorando ainda mais a barreira hematoencefálica e edema [5]. Assim, a urgência de buscar novas opções direcionadas é prioridade para CI/RI.
MicroRNAs (miRNAs) são extensivamente considerados como papéis potenciais e prognósticos em CI/RI [6, 7]. Por exemplo, um artigo demonstrou que miR-202-5p atenua danos neuronais e déficits neurológicos, bem como danos celulares induzidos por privação de oxigênio e glicose (OGD) em ratos modelo MCAO em lesão isquêmica [8]. Além disso, descobriu-se que a up-regulação de miR-98 melhora resultados neurológicos em camundongos com AVC I/R [9] e a superexpressão de miR-451 alivia apoptose cerebral isquêmica em camundongos com CI/RI [10]. Especificamente, miR-326-5p tem capacidade pró-angiogênica para células progenitoras endoteliais e pode melhorar a função cardíaca após infarto agudo do miocárdio [11]. No entanto, o estudo focado em miR-326-5p em CI/RI ainda está em sua infância. Transdutores de sinal e ativadores transcripcionais (STAT) são uma família única de proteínas ativada por CI/RI [12]. STAT3 foi previsto como alvo do miR-326-5p no site de bioinformática; assim, estudamos o papel do STAT3 mediado por miR-326-5p em CI/RI. STAT3 deteriora processos neuro-inflamatórios isquêmicos e lesão cerebral secundária liberando mediadores pró-inflamatórios [13, 14]. Especificamente, a via quinase Janus ativada 2 (JAK2)/STAT3 desempenha papel funcional no bloqueio de apoptose celular induzida por CI/RI [15]. Mitofusina-2 (Mfn2) é um fator de fusão mitocondrial que pode proteger contra I/R cardio-cerebrovascular [16] e amenizar apoptose neuronal induzida por hipóxia em dano cerebral isquêmico [17]. Também foi registrado que Mfn2 exerce efeito protetor em CI/RI [18].
Em suma, poucas investigações aprofundadas descobriram o papel combinado de miR-326-5p e STAT3 em CI/RI. Dado isso, este estudo foi lançado com a hipótese de que miR-326-5p atenua CI/RI via alvo STAT3.
Materiais e Métodos
Declaração de Ética
Os experimentos foram aprovados pelo Comitê de Cuidado e Uso de Animais do Hospital Afiliado da Universidade de Yangzhou; Universidade de Yangzhou, e foram realizados com o Guia para Cuidado e Uso de Ratos Experimentais do Hospital Afiliado da Universidade de Yangzhou; Universidade de Yangzhou.
Animais Experimentais
Ratos Sprague-Dawley machos adultos (6-8 semanas de idade, 250 ± 30 g) do Centro de Medicina Comparativa, Universidade de Yangzhou (Yangzhou, China), foram mantidos em ambiente livre de patógenos específicos com acesso livre a comida e água, (24 ± 1)°C, (50 ± 5)% umidade e ciclo de 12 h luz/escuro.
Isolamento e Identificação Celular
Os ratos foram eutanasiados por decapitação, e seus cérebros foram cortados em 1 mm3 para configurar suspensões celulares, que foram misturadas com solução de azul de tripano 0,4% a 9:1 (a concentração final de azul de tripano foi 0,04%) e a densidade celular e taxa de sobrevivência foram calculadas por um hemocitômetro. As células (1 × 10⁶ células/mL) foram semeadas em frasco de cultura celular pré-revestido com L-polisina (0,1 mg/mL) a 5 × 10⁶ células por frasco. Quando as células aderiram às paredes, foram incubadas com meio renovado (NeurobasalA + B27 + L-glutamina) e continuamente cultivadas por 6-7 d com o meio trocado pela metade a cada 2-3 d.
Identificação celular: Neurônios corticais de rato foram utilizados para preparar lâminas de neurônios que foram incubadas com anticorpo policlonal anti-rat Nestin (NES) de coelho primário (1:200), bem como anticorpo imunoglobulina G anti-coelho marcado com isotiocianato de fluoresceína (FITC) (1:50, ambos da Cell Signaling Technology, Beverly, MA, EUA). Posteriormente, as células foram seladas com um anti-quencher fluorescente e observadas por microscopia de fluorescência.
Estabelecimento do Modelo OGD
Neurônios foram cultivados em solução de Earle livre de glicose e expostos a uma mistura gasosa de 95% N2 e 5% CO2. Após 30 min de ventilação de pressão positiva, um ambiente hipóxico foi formado no qual as células foram incubadas (simulação de isquemia por OGD in vitro). Após 90 min de incubação, as células foram incubadas com o meio de manutenção celular após a remoção da solução de Earle livre de glicose. As células foram cultivadas rotineiramente para experimentos subsequentes (simulação de reperfusão por reperfusão oxigênio-glicose in vitro). O meio normal sob normoxia serviu como controle.
Neurônios foram divididos em grupo controle; grupo OGD, grupo controle negativo (NC) (neurônios tratados com OGD transfectados com oligonucleotídeos embaralhados), grupo agomir miR-326-5p (neurônios tratados com OGD transfectados com agomir miR-326-5p), grupo sh-STAT3 (neurônios tratados com OGD transfectados com shRNA STAT3) e grupo miR-326-5p agomir + superexpressão (oe)-STAT3 (neurônios tratados com OGD transfectados com agomir miR-326-5p e vetor pcDNA-STAT3). oligonucleotídeos e vetores foram todos fornecidos pela GenePharma (Shanghai, China).
Usando lipofectamine 2000 (Invitrogen; Thermo Fisher Scientific), oligonucleotídeos embaralhados, agomir miR-326-5p, shRNA STAT3 ou agomir miR-326-5p e pcDNA-STAT3 foram transfectados em neurônios primários de rato e a eficácia da transfeção foi testada por reação em cadeia da polimerase quantitativa de transcrição reversa (RT-qPCR) ou Western blot após 48 h.
Ensaio MTT
Neurônios foram feitos em suspensão a 1 × 10⁶ células/mL e cultivados por 0, 24 e 48 h, respectivamente. Em ambiente estéril, neurônios foram incubados por 2-4 h em solução MTT 10% e adicionados com 150 μL solução dissolvente de Formanzan (Dimetil Sulfoxido) até que o cristal fosse suficientemente dissolvido. O valor de densidade óptica (OD) foi medido em leitor de microplacas a 570 nm.
Ensaio de Apoptose por Citometria de Fluxo
Neurônios foram desprendidos com 0,25% tripsina, centrifugados a 2000 rpm e ressuspensos em PBS. Então, neurônios foram centrifugados a 2000 rpm, e o pellet foi ressuspenso por buffer de ligação e incubado sucessivamente com 5 μL Annexin V-FITC e 5 μL iodeto de propídio (PI). Um citômetro de fluxo foi aplicado para detectar taxa de apoptose.
Detecção de Potencial de Membrana Mitocondrial JC-1
Células em placa de 6 poços foram enxaguadas com PBS, adicionadas com 1 mL meio de cultura celular e 1 mL solução de trabalho de coloração JC-1 (50 μL JC-1, 8 mL água ultrapura e 2 mL buffer de coloração JC-1) (SolarbioScience, Beijing, China) e incubadas por 15 min. O buffer de coloração JC-1 1× foi configurado por 4 mL água destilada e 1 mL buffer de coloração JC-1. Após incubação, as células foram tripsinizadas, ressuspensas em buffer JC-1 e testadas em citômetro de fluxo. A proporção relativa de fluorescência verde foi calculada.
Detecção de Estresse Oxidativo
Níveis intracelulares de ROS foram medidos pelo Kit de Detecção de 2,7-diclorofluoresceína diacetato (DCF-DA) (Abcam). Em resumo, neurônios foram desprendidos com 0,25% tripsina, ressuspensos e incubados com 10 μm DCF-DA por 30 min. Após isso, fluorescência DCF com luz de excitação/emissão a 495 nm/529 nm foi medida por espectroscopia de fluorescência (BD Biosciences).
Detecção de conteúdo intracelular de malondialdeído (MDA), glutationa (GSH) e atividade de superóxido dismutase (SOD) foi feita por colorimetria química usando kits de ensaio comerciais (Beyotime Biotechnology Co., Shanghai, China). Valor OD foi medido por leitor de microplacas.
Estabelecimento do Modelo em Ratos
Ratos foram anestesiados por injeção intraperitoneal de pentobarbital sódico (50 μg/kg). Uma incisão mediana foi feita no pescoço, a carótida externa foi ligada, e a artéria carótida comum foi bloqueada com um clipe arterial. Uma sutura de nylon monofilamento revestida de silicone 3-0 foi cuidadosamente inserida na artéria carótida interna até resistência leve. Após 90 min de isquemia cerebral transitória, a sutura foi retirada e a reperfusão foi realizada por mais 24 h. O grupo sham recebeu o mesmo tratamento, exceto que a sutura não entrou na artéria carótida interna. Durante a operação, uma cama termostática foi usada para manter a temperatura retal a 37 ± 0,5 °C [19].
Ratos foram alocados em 6 grupos (n = 6) e injetados com plasmídeo ou miR no ventrículo lateral cerebral antes do estabelecimento dos modelos MCAO, incluindo grupo sham, grupo MCAO (ratos modelados), grupo NC (ratos modelados com injeção no ventrículo lateral cerebral de 5 μL oligonucleotídeos embaralhados [100 μM]), grupo agomir miR-326-5p (ratos modelados com injeção no ventrículo lateral cerebral de 5 μL agomir miR-326-5p [100 μM]), grupo sh-STAT3 (ratos modelados com injeção no ventrículo lateral cerebral de 5 μL vetor de interferência STAT3 [100 μM]) e grupo miR-326-5p agomir + oe-STAT3 (ratos modelados com injeção no ventrículo lateral cerebral de 5 μL agomir miR-326-5p [100 μM] e 5 μL vetor de superexpressão STAT3 [100 μM]) [20, 21].
Coleta de Espécimes
Ratos foram eutanasiados por anestesia, os corações foram perfundidos, e os cérebros inteiros foram obtidos. Os tecidos cerebrais lesionados foram cortados em massas de tecido de 1 × 1 × 1 mm3 para preparação de seções de parafina, RT-qPCR, análise de Western blot e detecção de potencial de membrana mitocondrial.
Detecção de Potencial de Membrana Mitocondrial no Córtex Cerebral
Córtex cerebral de ratos SD foi separado e cortado em 1 mm3. Os blocos de tecido foram colocados em uma rede de nylon de 300 mesh e adicionados com PBS. Então, a suspensão celular foi centrifugada a 1000 r/min, adicionada com 70% etanol e centrifugada a 1000 r/min novamente. Posteriormente, a amostra foi ressuspensa em 1 mL de PBS, e a suspensão (1 × 10⁶ células, 100 μL) foi reagida com solução de corante Rodamina123 (10 μL, 5 μg/mL) e analisada em citômetro de fluxo a 488 nm.
Coloração HE
O tecido cerebral do rato foi imerso em 4% paraformaldeído por 24 h, e seções de parafina foram preparadas, cortadas em 4 μm, espalhadas em água a 40 °C e assadas a 60 °C. Rotineiramente desparafinadas e hidratadas, as seções de parafina foram coradas por solução de coloração HE. Após coloração HE, os neurônios danificados mostraram contração do núcleo, edema celular, vacuolização e núcleos escurecidos. O microscópio de luz (Nikon, Japão) foi usado para obter a imagem, e o número de neurônios sobreviventes (mm2) do córtex isquêmico foi contado.
Coloração TUNEL
As seções de parafina foram desparafinadas e desidratadas com álcool 100%, 95%, 80% e 70%. Então, as seções foram imersas em 4% paraformaldeído seguida por incubação com 0,1% buffer citrato de Triton X-100 sódico por 20 min e mistura de reação TUNEL por 1-1,5 h. Em seguida, as seções foram desenvolvidas por solução de peroxidase e diaminobenzidina (DAB), contracoradas por hematoxilina, desidratadas por álcool gradiente, permeabilizadas e seladas em goma neutra. As seções foram observadas sob microscópio de luz para contar células TUNEL-positivas. Partículas amareladas no núcleo foram definidas como células TUNEL-positivas (células apoptóticas).
Imuno-histoquímica
As seções foram desparafinadas, hidratadas e recuperadas por antígeno citrato, e a catalase endógena foi bloqueada por 3% H2O2. Cada seção foi adicionada com soro de cabra (50 μL), incubada com anticorpo primário (50 μL) e reagida com anticorpo secundário (50 μL) e estreptavidina marcada com peroxidase de raiz-forte (50 μL). As seções foram desenvolvidas por DAB e contracoradas por hematoxilina, seguida por desidratação em álcool gradiente, permeabilização em xileno e selagem em goma neutra. As seções foram observadas por microscópio (citoplasma ou núcleo de tecidos cerebrais isquêmicos eram partículas amarelas ou amareladas). Valores OD foram medidos e calculada a média.
RT-qPCR
Extração total de RNA de tecidos e células foi realizada por Trizol (Invitrogen). Expressão de mRNA foi analisada através de qPCR usando SYBR Green PCR Mix (Applied Biosystems, CA, EUA) e sistema PCR em tempo real QuantStudio TM 6Flex (Applied Biosystems). Primers específicos de transcrição reversa em laço e primers forward/reverse (BioTNT, Shanghai, China) foram projetados para analisar níveis de miRNA. A Tabela 1 listou todos os primers. O método 2−ΔΔCT foi adotado para calcular níveis de miRNA ou mRNA.
Análise de Western Blot
Amostras de proteína foram separadas por eletroforese em gel de poliacrilamida com dodecil sulfato de sódio a 10% e eletrotransferidas para membrana de fluoreto de polivinilideno (PVDF). Após isso, a membrana PVDF foi bloqueada com 5% leite em pó desnatado em salina contendo Tris, sondada com anticorpos primários e re-sondada com anticorpo secundário por 2 h. Então, as bandas de proteína foram analisadas com buffer de fosfatase alcalina contendo cloreto de tetrazólio nitroazul e 5-Bromo-4-Cloro-3-Indolil Fosfato e quantificadas pelo software ImageJ (NIH, Bethesda, MD, EUA). Os principais anticorpos foram STAT3 (1:1000), Mfn2 (1:1000, Abcam, MA, EUA) e gliceraldeído-3-fosfato desidrogenase (GAPDH) (1:1000, Cell Signaling Technology, Beverly, MA, EUA).
Ensaio de Reporter de Luciferase Dupla
O 3'UTR do STAT3 contendo sítios de ligação wild-type (WT) ou mutante (Mut) do miR-326-5p foi clonado no vetor pmirGLO (Promega, WI, EUA), nomeado como STAT3-WT e STAT3-Mut. Células foram semeadas em placa de 24 poços a 2 × 10⁴ células/poço e co-transfectadas com 100 ng de vetor luciferase STAT3-WT ou STAT3-Mut e 50 nM agomir miR-326-5p ou seu agomir NC a 70% de confluência. Atividade de luciferase foi medida usando o Sistema de Ensaio de Reporter de Luciferase Dupla (Promega Corporation, WI, EUA).
Análise Estatística
Software estatístico SPSS 21.0 (IBM, NY, EUA) foi usado para análise de dados. Os dados foram expressos como média ± desvio padrão (SD). A diferença entre dois grupos foi analisada pelo teste t de Student, enquanto comparações múltiplas foram analisadas por análise de variância unidirecional (ANOVA), seguida pelo teste post hoc de Tukey. P representou teste bilateral, e P < 0,05 foi considerado significância estatística.
Resultados
Up-regulação de miR-326-5p ou Down-regulação de STAT3 Atenua Apoptose de Neurônios Corticais Tratados com OGD
Cultivados por uma semana, os neurônios corticais de rato foram diferenciados e maduros. Microscopicamente, os neurônios mostraram corpos neuronais maiores, citoplasma mais transparente, núcleo grande com baixa densidade e forte índice de refração. Os corpos neuronais eram cônicos ou arredondados, e os dendritos eram escalonados e aderidos às paredes (Fig. 1a, b). NES era um marcador químico específico de neurônios cerebrais para localizar neurônios com alta especificidade através de ensaio de imunofluorescência. Neurônios foram encontrados ligando especificamente a NES e mostraram fluorescência verde (Fig. 1c).
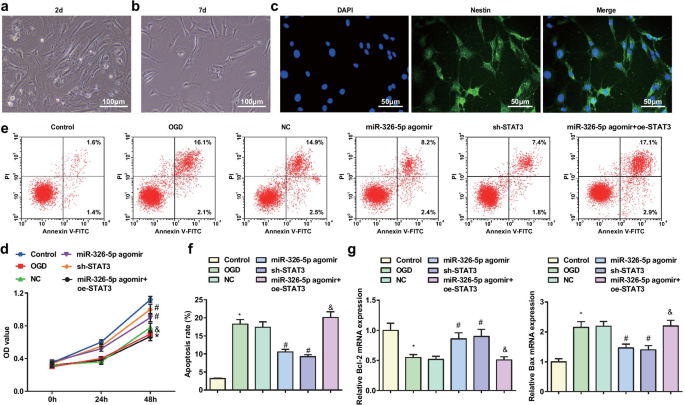
Ensaio MTT foi aplicado para detectar viabilidade de neurônios corticais (Fig. 1d). Os resultados demonstraram que a viabilidade de neurônios corticais de rato foi prejudicada no grupo OGD e no grupo miR-326-5p agomir + oe-STAT3 versus grupo controle e grupo agomir miR-326-5p, mas aumentada no grupo agomir miR-326-5p e grupo sh-STAT3 versus grupo NC (todos P < 0,05).
Apoptose de neurônios corticais de rato foi determinada por citometria de fluxo, enquanto expressão de mRNA Bcl-2 e Bax por RT-qPCR (Fig. 1e-g). Os resultados explicaram que em comparação com grupo controle e grupo agomir miR-326-5p, o grupo OGD e o grupo miR-326-5p agomir + oe-STAT3 demonstraram taxa de apoptose aumentada, expressão de Bcl-2 reduzida e expressão de Bax aumentada (todos P < 0,05). Com os grupos NC por contraste, a taxa de apoptose foi reduzida, nível de Bcl-2 foi elevado e nível de Bax foi suprimido no grupo agomir miR-326-5p e no grupo sh-STAT3 (todos P < 0,05).
Up-regulação de miR-326-5p ou Down-regulação de STAT3 Aumenta Mfn2 e Nível de Potencial de Membrana Mitocondrial em Neurônios Corticais Após Lesão OGD
Expressão de Mfn2 em neurônios corticais tratados com OGD foi detectada por análise de Western blot (Fig. 2a, b). Com relação ao grupo controle e grupo agomir miR-326-5p, a expressão de proteína Mfn2 reduziu no grupo OGD e grupo miR-326-5p agomir + oe-STAT3, enquanto aumentou no grupo agomir miR-326-5p e grupo sh-STAT3 versus grupo NC (todos P < 0,05).
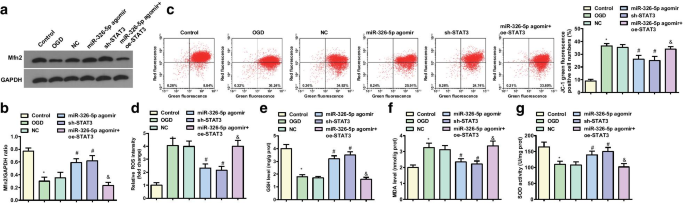
Potencial de membrana mitocondrial detectado por JC-1 mostrou que (Fig. 2c, d) com relação ao grupo controle e grupo agomir miR-326-5p, o nível de potencial de membrana mitocondrial diminuiu no grupo OGD e no grupo miR-326-5p agomir + oe-STAT3 (todos P < 0,05). Relativo aos grupos NC, o nível de potencial de membrana mitocondrial aumentou no grupo agomir miR-326-5p e grupo sh-STAT3 (todos P < 0,05).
Conteúdos de ROS e MDA, e atividades de GSH e SOD em neurônios corticais tratados com OGD foram determinados e os resultados indicaram que versus grupo controle e grupo agomir miR-326-5p, o grupo OGD e o grupo miR-326-5p agomir + oe-STAT3 apresentaram conteúdos aumentados de ROS e MDA e atividades de GSH e SOD prejudicadas (todos P < 0,05). Em comparação com os grupos NC, o grupo agomir miR-326-5p e grupo sh-STAT3 mostraram conteúdos reduzidos de ROS e MDA e atividades reforçadas de GSH e SOD (todos P < 0,05) (Fig. 2e-g).
Up-regulação de miR-326-5p ou Down-regulação de STAT3 Impede Dano Patológico de Neurônios Corticais e Inibe Apoptose em Ratos com CI/RI
Coloração HE foi adotada para observar o dano patológico de tecidos cerebrais (Fig. 3a, b), mostrando que no grupo sham, os neurônios eram normais em estrutura e ordenadamente arranjados com citoplasma vermelho pálido, núcleo azul e nucléolo claro. No grupo MCAO, grupo NC e grupo miR-326-5p agomir + oe-STAT3, exceto por necrose, observou-se que neurônios eram desordenadamente arranjados e corados mais escuros, com ruptura de membrana nuclear, desaparecimento da estrutura celular, cariopinose, núcleo profundamente corado e lise em grande quantidade. No grupo agomir miR-326-5p e grupo sh-STAT3, o inchaço neuronal foi aliviado e os neurônios foram arranjados ordenadamente, e as células necróticas foram reduzidas, indicando um melhor status em relação ao grupo MCAO e grupo NC.
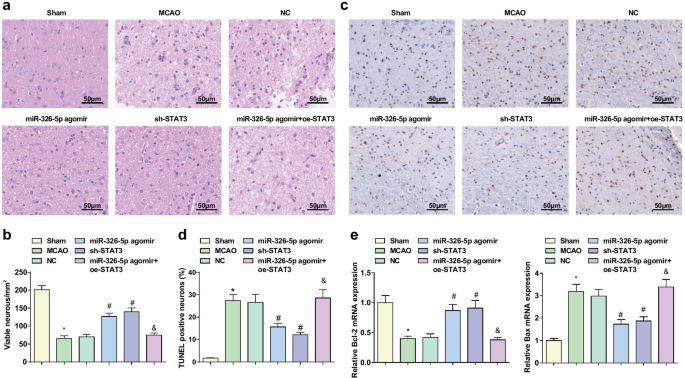
Coloração TUNEL foi utilizada para detecção de apoptose neuronal e RT-qPCR para expressão de mRNA Bcl-2 e Bax em tecidos cerebrais. Os resultados exibiram que (Fig. 3c-e) em comparação com grupo sham e grupo agomir miR-326-5p, a taxa TUNEL-positiva aumentou, expressão de mRNA Bcl-2 diminuiu e expressão de mRNA Bax aumentou no grupo MCAO e grupo miR-326-5p agomir + oe-STAT3 (todos P < 0,05). Menor taxa TUNEL-positiva e expressão de mRNA Bax, e maior expressão de mRNA Bcl-2 mostraram no grupo agomir miR-326-5p e grupo sh-STAT3 que o grupo NC (todos P < 0,05).
Up-regulação de miR-326-5p ou Down-regulação de STAT3 Aumenta Nível de Potencial de Membrana Mitocondrial em Tecidos Cerebrais em Ratos com CI/RI
Detecção de expressão de proteína Mfn2 em tecido cerebral de rato foi realizada por imuno-histoquímica, e os resultados exibiram que (Fig. 4a, b) menor expressão de proteína Mfn2 foi testada no grupo sham e grupo agomir miR-326-5p versus grupo MCAO e grupo miR-326-5p agomir + oe-STAT3, enquanto maior expressão de proteína Mfn2 foi medida no grupo agomir miR-326-5p e grupo sh-STAT3 em vez do grupo NC (todos P < 0,05).
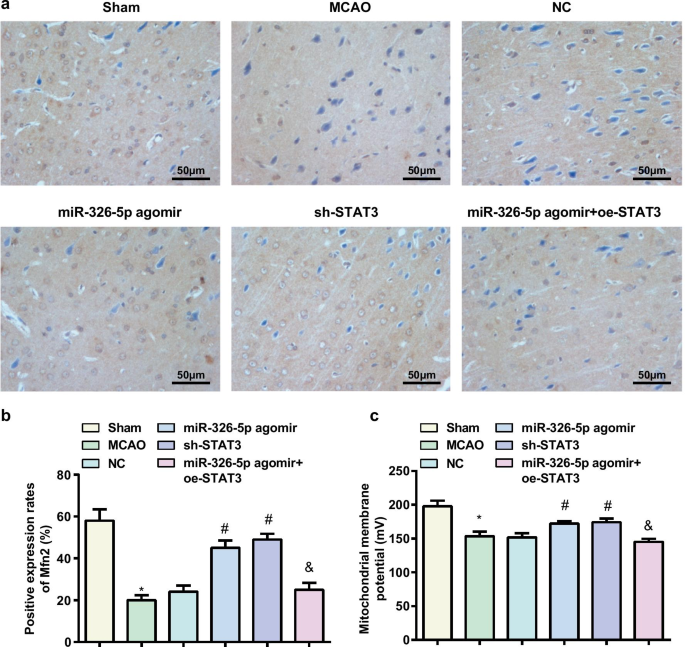
Detecção de nível de potencial de membrana mitocondrial descobriu que (Fig. 4c) por comparação com grupo sham e grupo agomir miR-326-5p, nível de potencial de membrana mitocondrial diminuiu no grupo MCAO e grupo miR-326-5p agomir + oe-STAT3, enquanto aumentou no grupo agomir miR-326-5p e grupo sh-STAT3 em contraste ao grupo NC (todos P < 0,05).
miR-326-5p Alvo STAT3
Expressão de miR-326-5p e STAT3 em neurônios corticais e tecidos cerebrais foram detectados por RT-qPCR e análise de Western blot. Em neurônios corticais in vitro, uma diminuição sugerida na expressão de miR-326-5p e um aumento na expressão de STAT3 no grupo OGD relativo ao grupo controle (ambos P < 0,05). Com relação ao grupo NC, expressão de miR-326-5p elevou e expressão de STAT3 reduziu no grupo agomir miR-326-5p (ambos P < 0,05); expressão de STAT3 diminuiu (P < 0,05) no grupo sh-STAT3. Em contraste ao grupo agomir miR-326-5p, expressão de STAT3 foi elevada no grupo miR-326-5p agomir + oe-STAT3 (P < 0,05) (Fig. 5a-c).
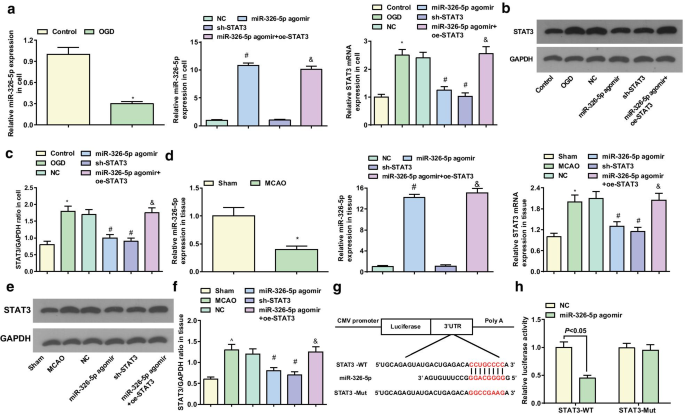
Em tecidos cerebrais in vivo, em relação ao grupo sham, menor miR-326-5p e maior STAT3 apareceram no grupo MCAO (ambos P < 0,05). Relativo ao grupo NC, expressão de miR-326-5p subiu enquanto expressão de STAT3 diminuiu no grupo agomir miR-326-5p (ambos P < 0,05). Expressão de STAT3 diminuiu no grupo sh-STAT3 (P < 0,05). Com o grupo agomir miR-326-5p por contraste, expressão de STAT3 elevou no grupo miR-326-5p agomir + oe-STAT3 (P < 0,05) (Fig. 5d-f).
Os sítios de alvo potenciais do miR-326-5p no 3'UTR do STAT3 foram encontrados pelos softwares DIANA e miRDB (Fig. 5g). O 3'UTR do STAT3 contendo sítio de ligação WT do miR-326-5p e sítio de ligação Mut foram construídos e inseridos no plasmídeo pmirGLO. A ligação do miR-326-5p ao 3'UTR do STAT3 foi validada adicionalmente por ensaio de reporter de luciferase. Ensaio de reporter de luciferase revelou que agomir miR-326-5p reduziu a atividade relativa de luciferase de STAT3-WT, mas não de STAT3-Mut (Fig. 5h), implicando que STAT3 era um gene alvo direto do miR-326-5p.
Discussão
CI/RI é a principal causa de morte cerebrovascular [22]. miRNAs são indicados como envolvidos em CI/RI [23]. No entanto, a compreensão abrangente do mecanismo relacionado ao miR-326-5p ainda é insuficiente em CI/RI. Assim, este estudo visa desenterrar os papéis concretos do miR-326-5p em CI/RI com ênfase no reciprocamente combinado de miR-326-5p e STAT3. Produtivamente, este estudo declarou que a up-regulação de miR-326-5p atenuou CI/RI e elevou a expressão de Mfn2 via inibição de STAT3.
No início, a expressão de miR-326-5p foi determinada a reduzir em CI/RI in vivo e in vitro. Subsequentemente, organizamos uma série de ensaios e descobrimos que up-regular miR-326-5p aumentou a viabilidade neuronal e função mitocondrial, elevou a expressão de Mfn2 e restringiu estresse oxidativo e apoptose. Além disso, experimentos in vivo em ratos verificaram ainda mais os papéis funcionais do miR-326-5p restaurado em CI/RI. De fato, alto miR-326 é comprovado correlacionar com sobrevivência global longa de pacientes com glioblastoma, o tipo comum de tumor cerebral [24]. Também, a expressão de miR-326 foi evidenciada a reduzir na doença de Parkinson e miR-326 poderia suprimir apoptose de neurônios dopaminérgicos e reduzir resposta inflamatória [25]. Exceto isso, a redução em miR-326-5p é manifestada em células progenitoras endoteliais no curso de infarto do miocárdio, e introdução de células progenitoras endoteliais superexpressando poderia promover recuperação da função cardíaca [11]. Houve um estudo ilustrando que up-regulação de miR-326 melhora a função comportamental, aumenta a viabilidade neuronal e deprime apoptose neuronal em camundongos com doença de Alzheimer [26]. Além disso, está documentado que up-regulação de miR-326 por mimético miR-326 poderia suprimir sintase de óxido nítrico indutível em neurônios dopaminérgicos na doença de Parkinson [27].
Neste estudo, descobrimos que STAT3 era um gene alvo de miR-326-5p. Apoiado por um estudo avançado, é indicado que a expressão de STAT3 é regulada negativamente por miR-326 em células-tronco de carcinoma endometrial humano [28]. No presente estudo, medimos que a expressão de STAT3 foi aumentada em CI/RI. Atualmente, foi descoberto que lesão I/R e OGD induziriam expressão de STAT3 a aumentar [29]. Intrigantemente, a expressão de mRNA STAT3 tende a um incremento em animais I/R [30]. Adicionalmente, a expressão de proteína STAT3 é reportada a up-regular em CI/RI [31]. Em seguida, nosso estudo revelou que down-regular STAT3 teve efeitos terapêuticos em ratos CI/RI e neurônios tratados com OGD. Como apoiado por um estudo, conclui-se que a indução de miR-31 desencoraja estresse oxidativo por inativação da via JAK/STAT3 em AVC isquêmico [32]. Também, inibição da via JAK2/STAT3 é benéfica para prejuízo de estresse oxidativo em CI/RI [31]. Além disso, knockdown da via JAK/STAT3 é identificado para aumentar viabilidade celular, e reduzir estresse oxidativo e apoptose neuronal em lesão cerebral isquêmica [33]. Recentemente, via de sinalização JAK/STAT3 inibida é testemunhada para aliviar infarto do miocárdio em lesão I/R miocárdica [34]. Como demonstrado, STAT3 depletado mina apoptose neuronal em ratos com lesão de substância branca [35]. Além disso, a supressão de apoptose neuronal e alívio do tamanho do infarto cerebral são atribuídos à inibição JAK2/STAT3 em ratos com CI/RI [36].
Finalmente, focamos nos efeitos de miR-326-5p e STAT3 na expressão de Mfn2 e descobrimos que o nível reduzido de Mfn2 em ratos com CI/RI e neurônios tratados com OGD poderia ser elevado por restaurar miR-326-5p ou silenciar STAT3. Como implicado por estudo anterior, é documentado que Mfn2 é diminuído na fase tardia de reperfusão e pobremente expresso de Mfn2 exacerba CI/RI via formação de autofagossomo restrita e fusão de autofagossomo e lisossomo [18]. Adicionalmente, Mfn2 é implicado a reduzir até desaparecer em lesão I/R em hepatócitos velhos [37]. No entanto, poucas pesquisas discutiram o mecanismo regulatório de miR-326-5p e STAT3 para Mfn2.
Conclusão
Em geral, este estudo elucidou os mecanismos que miR-326-5p elevado inibe apoptose neuronal, atenua dano patológico de neurônios e aumenta a expressão de Mfn2 via down-regulação de STAT3 em CI/RI. O estudo pode atualizar o mecanismo potencial de miR-326-5p e STAT3 em CI/RI. No entanto, mais estudos ainda são necessários para maior desenvolvimento do mecanismo molecular em CI/RI.
Disponibilidade de dados e materiais
Não aplicável.
Abreviações
- miRNAs:
- MicroRNAs
- STAT3:
- Transdutor de sinal e ativador de transcrição-3
- OGD:
- Privação de oxigênio e glicose
- MCAO:
- Oclusão da artéria cerebral média
- ROS:
- Espécies reativas de oxigênio
- STAT:
- Transdutores de sinal e ativadores transcripcionais
- Mfn2:
- Mitofusina-2
- FITC:
- Isotiocianato de fluoresceína
- NES:
- Nestina
- NC:
- Controle negativo
- Oe:
- Superexpressão
- RT-qPCR:
- Reação em cadeia da polimerase quantitativa de transcrição reversa
- OD:
- Densidade óptica
- PI:
- Iodeto de propídio
- MDA:
- Malondialdeído
- GSH:
- Glutationa
- SOD:
- Superóxido dismutase
- DAB:
- Diaminobenzidina
- PVDF:
- Fluoreto de polivinilideno
- WT:
- Wild-type (tipo selvagem)
- Mut:
- Mutante
- SD:
- Desvio padrão
- ANOVA:
- Análise de variância unidirecional
Nanomateriais
- Danos por Incêndio e Prevenção: Estratégias Especializadas para Proteger Vidas e Propriedades
- Direcionamento do Eixo miR-342-5p/Wnt3a Estabiliza Placas Ateroscleróticas e Suprime Angiogênese em Camundongos ApoE−/−
- Nanopartículas de mPEG Carregadas com Icarina: Proteção Aumentada Contra Cardiotoxicidade Induzida por LPS em Células H9c2
- Nanocompósitos Híbridos Núcleo-Casca Celulose-POSS-Sílica/Ouro: Síntese Sol-Gel em Uma Etapa e Propriedades Multifuncionais
- Lipossomos PEGilados Melhoram a Solubilidade, Farmacocinética e Citotoxicidade em Glioma da Bufalina
- SnO₂ Mesoporoso do Tipo Wormhole Sintetizado Facilmente via Auto-Montagem Induzida por Evaporação: Desempenho Superior como Sensor de Gás Etanol
- Ajuste da Função de Trabalho do Grafeno via Tamanho, Funcionalização, Defeitos e Dopagem: Uma Investigação de Primeiros Princípios
- Nanopartículas Duplo-Alvo Sensíveis a Redox Co-entregam Curcumina a Mitocôndrias de Tumores CD44-Positivos
- Membrana de Alginato de Sódio–Óxido de Grafeno Sulfonado: Condutividade de Prótons Superior e Baixa Permeabilidade a Metanol para Células a Combustível de Metanol Direto
- Pontos Quânticos de Carbono Fluorescentes Brilhantes a Partir de Suco de Limão: Síntese Hidrotérmica e Caracterização Óptica