



miR-326 Exossomal de Macrófagos M1 Suprime Progressão do Carcinoma Hepatocelular Modulando Sinalização NF-κB
Resumo
Evidências acumuladas têm mostrado que microRNA (miR) derivado de exossomos de macrófagos M1 pode regular a progressão do carcinoma hepatocelular (CHC). No entanto, o efeito do miR-326 derivado de exossomos de macrófagos M1 no CHC não foi relatado. Portanto, o objetivo do presente estudo foi explorar o mecanismo do miR-326 exossomal de macrófagos M1 na regulação da progressão de células de CHC. RT-qPCR detectou expressão de miR-326 em linhagens de células de CHC. A expressão de miR-326 no CHC foi alterada por transfeção, e o efeito do miR-326 na expressão de CD206 e NF-κB, proliferação celular, formação de colônias, migração, apoptose e invasão foi detectado. Subsequentemente, exossomos foram isolados de macrófagos M1. RT-qPCR identificou expressão de miR-326 em exossomos derivados de macrófagos M1. A expressão de miR-326 em exossomos derivados de macrófagos M1 foi alterada por transfeção. Exossomos derivados de macrófagos M1 foram co-cultivados com células de CHC para determinar seus efeitos no progresso biológico das células de CHC. Finalmente, experimentos in vivo foram realizados para verificar os resultados in vitro. O miR-326 estava diminuído em células de CHC e enriquecido em exossomos derivados de macrófagos M1. A up-regulação do miR-326 inibiria proliferação celular, formação de colônias, migração, invasão e expressão de CD206 e NF-κB e promoveria apoptose, e inibiria o crescimento de tumores de CHC in vivo, enquanto a down-regulação do miR-326 mostrou efeitos opostos. Exossomos derivados de macrófagos M1 inibiram proliferação celular, formação de colônias, migração, invasão e expressão de CD206 e NF-κB e aumentaram apoptose, enquanto a superexpressão de miR-326 aumentou o efeito dos exossomos derivados de macrófagos M1 nas células de CHC. Revela-se que macrófagos M1 derivados de exossomos miR-326 suprimem proliferação, migração e invasão, bem como avançam apoptose de CHC através da down-regulação da expressão de NF-κB.
Introdução
Carcinoma hepatocelular (CHC) é o quinto câncer mais comum globalmente e o câncer primário de fígado mais comum [1]. Manifestado pelos dados do Registro Nacional de Câncer da China, a taxa de mortalidade do câncer primário de fígado está listada em terceiro, enquanto a incidência é a quarta entre malignidades comuns [2]. Os principais fatores de risco para CHC são infecção crônica com vírus da hepatite C e vírus da hepatite B, alimentos contaminados com aflatoxina, obesidade, tabagismo, consumo pesado de álcool e diabetes tipo 2 [3]. Quimioembolização transarterial é um tratamento estabelecido para CHC em estágio intermediário, que melhora a sobrevida na maioria dos pacientes com CHC em estágios intermediários ou avançados [4]. Atualmente, o diagnóstico de CHC depende majoritariamente de biomarcadores séricos e técnicas de imagem [5]. A taxa de sobrevida de 5 anos relacionada ao CHC é apenas cerca de 60%, e a incidência aumenta ano a ano nos últimos anos [6]. Dado isso, pesquisar alvos terapêuticos precisos é prioridade no tratamento de CHC.
Macrófagos são células efetoras e principais reguladores do sistema imune, exercem enormes funções na remodelação e reparo de tecidos, e realizam funções metabólicas orquestradas em quase todos os tecidos in vivo [7]. Revela-se que macrófagos M1 exercem efeitos promotores de tumor e aumentam a motilidade de células de CHC [8]. Exossomo é uma vesícula discoide com diâmetro de 40–150 nm [9]. Segundo Xu et al., microRNAs (miRNAs) exossomais têm funções em proliferação, invasividade, metástase e resistência a drogas de CHC via modulação da expressão gênica nas células-alvo [10]. Um estudo demonstrou que miR-326 contendo exossomos poderia ser um alvo clínico potencial em esclerose múltipla [11]. MiRNAs podem atuar como oncogenes ou inibidores de tumor através da modulação de um grande número de genes codificadores de proteínas por meio de degradação de mRNA e bloqueio de tradução em uma sequência específica [12]. Um estudo discutiu que miR-326 suprime crescimento de células de CHC através de perturbação da progressão do ciclo celular e aumento da apoptose, além de suprimir invasão celular via diminuição do fenótipo de transição epitelial-mesenquimal [13]. Outro estudo relatou que miR-326 poderia ser um alvo terapêutico potencial para tratamento de pacientes com CHC [14]. Portanto, este estudo presente discutiu o mecanismo do miR-326 exossomal regulando a invasão e migração de células de CHC.
Materiais e Métodos
Declaração de Ética
Todos os experimentos com animais estavam em conformidade com o Guia para Cuidado e Uso de Animais de Laboratório por Comitês Internacionais. O protocolo foi aprovado pelo Comitê Institucional de Cuidado e Uso de Animais do Terceiro Hospital da Universidade de Jilin.
Indução e Identificação de Macrófagos
Linhagem de células monocíticas humanas THP-1 (Instituto de Zoologia de Kunming, CAS, Kunming, China) foi cultivada em meio RPMI 1640 (Gibco, CA, EUA; Thermo Fisher Scientific, MA, EUA) contendo 10% de soro fetal bovino (SFB) inativado por calor. Células THP-1 foram reagidas com 150 ng/mL de forbol 12-miristato 13-acetato (PMA; P8139, Sigma-Aldrich, SF, CA, EUA) e incubadas em meio RPMI por 24 h para obter macrófagos M0. Em seguida, a morfologia celular antes e após indução foi observada por coloração de Wright. Células THP-1 e macrófagos induzidos foram ressuspensos em 5 μL PBS, depositados em lâmina de vidro, corados com solução de corante de Wright e misturados com solução tampão a 1:2. Corados por 10 min e enxaguados com água corrente, as células foram observadas sob microscópio. Além disso, marcadores de macrófagos M0 (CD68 e CD206) foram medidos por reação em cadeia da polimerase de transcrição reversa quantitativa (RT-qPCR). Em seguida, macrófagos foram induzidos em macrófagos M1 através de incubação com 20 ng/mL Interferon (IFN)-γ (#285-IF; R&D Systems, MN, EUA) e 10 pg/mL LPS (#8630; Sigma-Aldrich) por 18 h. Marcadores de macrófagos M1 (IDO1 e IL-12 p35) foram examinados por RT-qPCR [15].
Extração de Exossomos
Os exossomos foram extraídos por kit de separação de exossomos (ExoEasy Maxi Kit, Qiagen, Hilden, Alemanha). O sobrenadante de macrófagos foi coletado em tubo de centrífuga de 15 mL sob condições assépticas e filtrado por filme de filtro de 0,8 μm. O sobrenadante celular em cada grupo foi adicionado com tampão XBP (1:1) e então centrifugado com coluna de centrifugação de afinidade de membrana exoEasy a 500g. Células foram suplementadas com 10 mL tampão XWP e centrifugadas com 3000–5000g. A coluna de centrifugação de afinidade de membrana exoEasy foi incubada com 400 μL tampão de eluição XE e centrifugada a 500g. O tampão de eluição foi transferido para coluna de centrifugação de afinidade de membrana exoEasy e centrifugado a 500g. O tampão de eluição foi armazenado por 24 h a 4 °C e então usado para identificação. O restante foi armazenado a −80 °C.
Observação por MET e Análise de Rastreamento de Nanopartículas (NTA)
Os exossomos obtidos acima foram depositados em malha de cobre com membrana de carbono e adicionados com ácido 2% fosfotungstico. A amostra foi observada sob MET, e a imagem ideal foi coletada e analisada.
As impurezas e partículas em PBS foram removidas por filtro microporoso de 0,22 μm. De acordo com a densidade de partículas dos exossomos, o PBS filtrado foi diluído para concentração apropriada e detectado usando detector de nanopartículas Nanosight NS300 (Malvern, Westborough, MA, EUA).
Após identificação, exossomos derivados de macrófagos transfeccionados com inibidor de miR-326 e controle negativo (CN) de inibidor de miR-326, mimético de miR-326 e CN de mimético de miR-326 foram extraídos por kit de separação de exossomos (Invitrogen).
RT-qPCR
O RNA total foi extraído por Reagente Trizol (Thermo Fisher), e PCR em tempo real foi realizado usando SYBR-Green PCR Master Mix (Roche) e Sistema ABI 7500 Real-Time PCR (Life Technologies, Grand Island, NY, EUA). As sequências dos primers são mostradas na Tabela 1. A análise quantitativa foi realizada usando o método 2−△△Ct.
Análise de Western Blot
A proteína total de células e exossomos foi extraída. A concentração de proteína foi determinada por kit de ácido bicinconínico (BCA) (Boster Biological Technology Co. Ltd., Wuhan, Hubei, China). A proteína foi adicionada com tampão de amostra e fervida a 95 °C, e cada poço foi carregado com 30 µg. A proteína foi separada com eletroforese em gel de poliacrilamida a 10% (Boster Biological Technology) e eletrotransferida para membrana de fluoreto de polivinilideno, que foi seguida por bloqueio em 5% albumina sérica bovina (BSA). A membrana foi incubada com anticorpo primário contra CD63 (1:1000, Developmental Studies Hybridoma Bank, University of Iowa, Ames, IA, EUA), CD181 (1:1000, R&D Systems), GAPDH (1:2000, Jackson ImmunoResearch Laboratories, PA, EUA) e com anticorpo secundário (1:500, Jackson ImmunoResearch Laboratories) marcado por peroxidase de raiz-forte. As imagens foram obtidas por sistema de imagem de fluorescência infravermelha de cor dupla Odyssey, e os valores de cinza das bandas foram medidos por software de análise de imagem Quantity One.
Cultura Celular e Triagem
Linhagem de células hepáticas normais HL-7702 e linhagens de células de CHC humanas BEL-7404, HepG2, SMMC-7721 e QGY-7703 foram selecionadas e cultivadas em Gibco RPMI Media 1640 com 10% soro fetal bovino (SFB), penicilina (100 U/mL) e estreptomicina (100 mg/mL). A expressão de miR-326 foi detectada por RT-qPCR, e as linhagens celulares adequadas foram triadas.
Marcação de Exossomos e Captação de Exossomos
Os exossomos foram ressuspensos com 250 μL Diluent C e triturados suavemente evitando danos à membrana do exossomo. O corante PKH67 (1 μL, Sigma-Aldrich) foi adicionado a 250 μL Diluent C para atingir 500 μL e incubado. A solução foi adicionada com 500 μL 1% BSA e incubada a 37 °C por 1 min. Os exossomos foram obtidos por centrifugação a 120.000g 4 °C por 2 h. Os exossomos marcados com PKH67 foram obtidos por centrifugação a 120.000g 4 °C por 2 h. Os exossomos foram ressuspensos com 6 mL meio RPMI-1640 evitando luz. Em seguida, os exossomos marcados foram co-cultivados com células de CHC por 12 h. Após isso, o meio de cultura foi removido e lavado com PBS por 3 vezes, 5 min/vez, e os exossomos marcados com fluorescência que não foram internamente absorvidos pelas células de CHC foram completamente lavados. Os exossomos foram fixados com 4% paraformaldeído e corados com 4'-6-diamidino-2-fenilindol. Após selagem, a distribuição de fluorescência foi observada por microscópio confocal a laser.
Agrupamento e Tratamento Celular
Células HepG2 e SMMC-7721 foram semeadas em placa de 12 poços a 0,5–1 × 10⁶ células/poço. Com 50–60% de confluência, as células foram transfeccionadas com Lipofectamine 2000 (Invitrogen, Carlsbad, CA). Células HepG2 foram distribuídas em grupo miR-326-mimético (transfeccionado com mimético de miR-326) e grupo CN-mimético (transfeccionado com CN de mimético de miR-326). Células SMMC-7721 foram atribuídas a grupo miR-326-inibidor (transfeccionado com inibidor de miR-326) e grupo CN-inibidor (transfeccionado com CN de inibidor de miR-326). Mimético de miR-326, inibidor de miR-326 e seus CNs foram misturados com Lipofectamine 2000 para transfeção. Células HepG2 e SMMC-7721 sem qualquer tratamento foram definidas como grupo branco. Mimético de miR-326, inibidor de miR-326 e seus CNs foram projetados e compostos por Guangzhou RibBio Co., Ltd. (Guangzhou, China) (Tabela 1).
Co-cultura de Exossomos Derivados de Macrófagos M1 com Células de CHC
A concentração de proteína da suspensão de exossomos derivados de macrófagos M1 foi detectada pelo método BCA, e o volume da suspensão de exossomos correspondente com 50 μg de proteína foi calculado. Células HepG2 e SMMC-7721 foram semeadas em placa de 12 poços a 1 × 10⁵ células/mL por poço. Células HepG2 foram distribuídas em 4 grupos: grupo controle (células HepG2 não co-cultivadas com exossomos), grupo exossomos (Exo) (células HepG2 co-cultivadas com exossomos derivados de macrófagos M1), grupo Exo-miR-326-mimético (células HepG2 co-cultivadas com exossomos derivados de macrófagos M1 transfeccionados com mimético de miR-326), grupo Exo-CN-mimético (células HepG2 co-cultivadas com exossomos derivados de macrófagos M1 transfeccionados com CN de mimético de miR-326). Células SMMC-7721 também foram atribuídas a 4 grupos: grupo branco (células SMMC-7721 não co-cultivadas com exossomos), grupo Exo (células SMMC-7721 co-cultivadas com exossomos derivados de macrófagos M1), grupo Exo-miR-326-inibidor (células SMMC-7721 co-cultivadas com exossomos derivados de macrófagos M1 transfeccionados com inibidor de miR-326), grupo Exo-CN-inibidor (células SMMC-7721 co-cultivadas com exossomos derivados de macrófagos M1 transfeccionados com CN de inibidor de miR-326).
Ensaio MTT
As células foram desprendidas com tripsina e semeadas em placa de 96 poços com densidade celular de 4 × 10⁴ células por poço. O meio de cultura foi abandonado após cultivo por 12, 24, 36, 48, 60 h, respectivamente. Incubadas com 500 μL solução MTT 0,5 g/L, as células foram adicionadas com 200 μL solução de dimetilsulfóxido, trituradas e incubadas. Valores de densidade óptica (DO, 490 nm) foram medidos por leitor de microplacas.
Ensaio de Formação de Colônias
Cultivadas por 24 h e desprendidas com tripsina, as células foram semeadas em prato pequeno de 35 mm com 300 células por prato. A solução foi substituída a cada 3 dias. Após 10 dias de cultura, as células foram fixadas com 40 g/L−1 paraformaldeído e coradas com solução de violeta de cristal 1 g/L−1 e secas. Número de colônias (mais de 50 células) foi contado sob microscópio.
Ensaio Transwell
Células (1 × 10⁵) foram suspensas com 200 μL meio de cultura em branco. Experimentos foram conduzidos em conformidade com a instrução da câmara Transwell (Corning Glass Works, Corning, N.Y., EUA) (matrigel foi necessário para experimento de invasão, mas não para experimento de migração). RPMI 1640 (10% SFB, 600 μL) foi adicionado na câmara inferior. As câmaras superior e inferior foram separadas por membrana Transwell pré-revestida com matrigel (BD Biosciences, Franklin Lakes, NJ, EUA). Cultivadas por 24 h, a câmara foi fixada com 95% álcool. Após coloração com solução de violeta de cristal, as células foram observadas em cinco campos visuais sob microscópio.
Citometria de Fluxo
Ciclo celular: células foram desprendidas por tripsina. Células (1 × 10⁶) foram suspensas com 0,5 mL PBS e trituradas em suspensão única. Misturadas com 4,5 mL etanol 70% pré-resfriado em gelo, as células foram centrifugadas a 3000g, enxaguadas com 5 mL PBS e centrifugadas novamente a 3000g. Seguido por isso, as células foram suspensas com 1 mL solução de coloração PI/Triton X-100 (20 μg PI/0,1% Triton X-100) contendo 0,2 mg RnaseA. Ciclo celular foi detectado por citometria de fluxo.
Apoptose celular: Células tripsinizadas (1 × 10⁶) foram suspensas com 1 mL PBS, trituradas e centrifugadas a 3000g. Células foram enxaguadas por sua vez com tampão de incubação (10 mmol/L Hepes/NaOH, pH 7,4, 140 mmol/L NaCl, 5 mmol/L CaCl2) e centrifugadas a 3000g. Em seguida, as células foram incubadas com 100 μL solução de marcação (FITC-Annexin V e PI foram adicionados ao tampão de incubação para atingir 1 μg/mL), centrifugadas a 3000g, lavadas uma vez com tampão de incubação e incubadas com solução fluorescente (SA-FLOUS). Apoptose celular foi detectada por citometria de fluxo. O comprimento de onda da citometria de fluxo foi 488 nm, e fluorescência FITC foi detectada por filtro de banda a 515 nm, enquanto PI com comprimento de onda maior que 560 nm. Os resultados foram analisados automaticamente por computador.
Xenotransplante de Tumor em Camundongos Nude
Quarenta camundongos (Faculdade de Ciências Animais, Universidade de Jilin, Jilin, China) com 4–6 semanas foram distribuídos aleatoriamente em 8 grupos, com 5 camundongos em cada grupo. Os camundongos foram alimentados em laboratório animal de grau livre de patógenos específicos por 1 semana, e a ração, forração e garrafa de água foram substituídas a tempo. O estado de saúde dos camundongos deve ser observado todos os dias. Uma semana depois, células de CHC foram preparadas em suspensão celular e injetadas subcutaneamente no pescoço e dorso a 0,1 mL suspensão celular (1 × 10⁶). O crescimento do tumor foi observado após 3–5 dias. Os camundongos nude foram pesados a cada 4 dias, e o volume do tumor foi medido. Os camundongos nude foram eutanasiados 20 dias após injeção.
Análise Estatística
Todos os dados foram interpretados por software SPSS 17.0 (SPSS Statistics, Chicago, IL, EUA). Dados de medição foram indicados como média ± desvio padrão. Comparações entre dois grupos foram formuladas pelo teste t, enquanto comparações entre múltiplos grupos foram avaliadas por análise de variância unidirecional (ANOVA). Valor P < 0,05 foi indicativo de diferença estatisticamente significativa.
Resultados
Identificação de Macrófagos M1 e Exossomos
Coloração de Wright foi utilizada para observar a morfologia de células THP-1 induzidas por PMA. Foi observado que o volume de células THP-1 antes da indução era pequeno e a proporção de carioplasma era maior; a morfologia das células após indução era irregular, o volume tornou-se maior, e a proporção de carioplasma diminuiu; o citoplasma era mais rico e apresentava cor azul clara, com partículas abundantes e alguns vacúolos; o núcleo era vermelho arroxeado e frequentemente inclinado para um lado, mostrando que as células tinham as características morfológicas típicas de macrófagos (Fig. 1a).
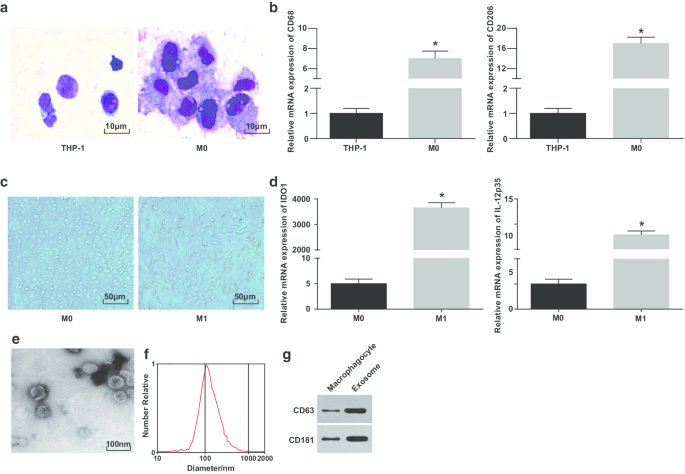
Para verificar ainda mais a indução bem-sucedida de macrófagos, a expressão de CD68 e CD206 antes e após indução foi testada por RT-qPCR. Manifestou-se que a expressão de CD68 e CD206 foi elevada desde a indução por PMA, indicando que o PMA induziu com sucesso células THP-1 em macrófagos M0 (Fig. 1b). Em seguida, macrófagos M0 foram polarizados em macrófagos M1 por indução de LPS e IFN-γ. A morfologia e expressão de marcadores de superfície de macrófagos tipo M1 IDO1 e IL-12 p35 foram observados e testados. Macrófagos M0 mostraram morfologias aderentes variadas e irregulares, mostrando forma redonda, elíptica ou fusiforme. A morfologia de macrófagos estimulados por IFN-γ demonstrou com mais pseudópodes e protrusões e fusiformes (Fig. 1c). RT-qPCR delineou (Fig. 1d) que após tratamento com LPS e IFN-γ, macrófagos M1 mostraram aumento em seus marcadores (IDO1 e IL-12p35).
Subsequentemente, os exossomos derivados de macrófagos foram observados por MET. Revelou-se que os exossomos derivados de macrófagos eram ricos e a forma era redonda ou oval, com estrutura membranosa, tamanho uniforme e menos poluentes (Fig. 1e). NTA exibiu que exossomos com pico centralizado da curva MODE e linear suave tinham diâmetro mais concentrado e menos impurezas (Fig. 1f). Análise de Western blot relatou que versus macrófagos, a expressão da proteína marcadora específica CD63 e CD181 aumentou em exossomos derivados de macrófagos (Fig. 1g). Estes resultados indicam que induzimos com sucesso monócitos a diferenciar em macrófagos e polarizá-los em macrófagos M1.
Exossomos Derivados de Macrófagos M1 Entregam miR-326 a Células de CHC e Afetam Expressão de miR-326 em Células de CHC
Para verificar se exossomos derivados de macrófagos M1 transportavam miR-326 para células de CHC, células HepG2 e SMMC-7721 foram co-cultivadas com exossomos. Pôde ser reconhecido que um grande número de exossomos foi assimilado por células HepG2 e SMMC-7721 após 4 h de transfeção sob microscópio de fluorescência (Fig. 2a, b).
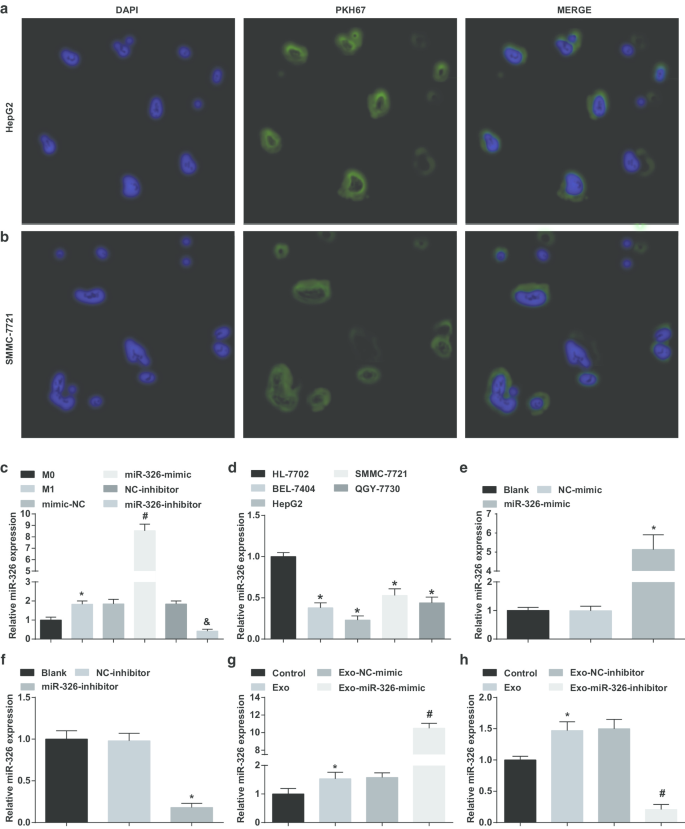
Subsequentemente, mimético/inibidor de miR-326 foi transfeccionado em macrófagos e verificada expressão de miR-326 em seus exossomos antes e após transfeção. Foi exibido que versus exossomos de macrófagos M0, a expressão de miR-326 foi aumentada em exossomos derivados de macrófagos M1. Expressão elevada de miR-326 foi vista em exossomos derivados de macrófagos M1 com tratamento de mimético de miR-326. Expressão de miR-326 reduziu em exossomos derivados de macrófagos M1 com tratamento de inibidor de miR-326 (Fig. 2c).
Então, expressão de miR-326 em linhagens de células de CHC foi testada. Como manifestado, expressão de miR-326 foi diminuída em células BEL-7404, HepG2, SMMC-7721 e QGY-7703 comparado a células HL-7702, entre as quais células HepG2 manifestaram com a menor expressão, enquanto células SMMC-7721 com a maior expressão (Fig. 2d).
Seguido por isso, mimético de miR-326 e inibidor de miR-326 foram transfeccionados em células HepG2 e SSMC-7721, respectivamente, e examinados seus efeitos na expressão de miR-326. Mimético de miR-326 elevou expressão de miR-326 em células HepG2, enquanto inibidor de miR-326 reduziu expressão de miR-326 em células SSMC-7721 (Fig. 2e, f).
Em seguida, os exossomos de macrófagos M1 transfeccionados com mimético de miR-326 e inibidor de miR-326 foram co-cultivados com células HepG2 e SSMC-7721, respectivamente. Foi destacado que co-cultura com exossomos aumentou expressão de miR-326 em células de CHC, exossomos derivados de macrófagos M1 transfeccionados com mimético de miR-326 aumentaram ainda mais expressão de miR-326 em células HepG2, enquanto exossomos derivados de macrófagos M1 transfeccionados com inibidor de miR-326 degradaram expressão de miR-326 em células SSMC-7721 (Fig. 2g, h). Sugere-se que exossomos derivados de macrófagos M1 entregam miR-326 a células de CHC e afetam expressão de miR-326 em células de CHC.
miR-326 Exossomal Derivado de Macrófagos M1 Reduz Proliferação Celular e Capacidade de Formação de Colônias em Células de CHC
Ao explorar o efeito do miR-326 exossomal na proliferação de células de CHC, ensaios MTT e de formação de colônias foram conduzidos para examinar proliferação de células de CHC. Sugeriu-se que em células HepG2, restauração de miR-326 prejudicou proliferação celular e capacidade de formação de colônias (Fig. 3a, e, f). Exossomos derivados de macrófagos M1 obstruíram células HepG2 a proliferar e formar colônias. Exossomos derivados de macrófagos M1 transfeccionados com mimético de miR-326 prejudicaram ainda mais proliferação celular e capacidade de formação de colônias (Fig. 3c, i, j).
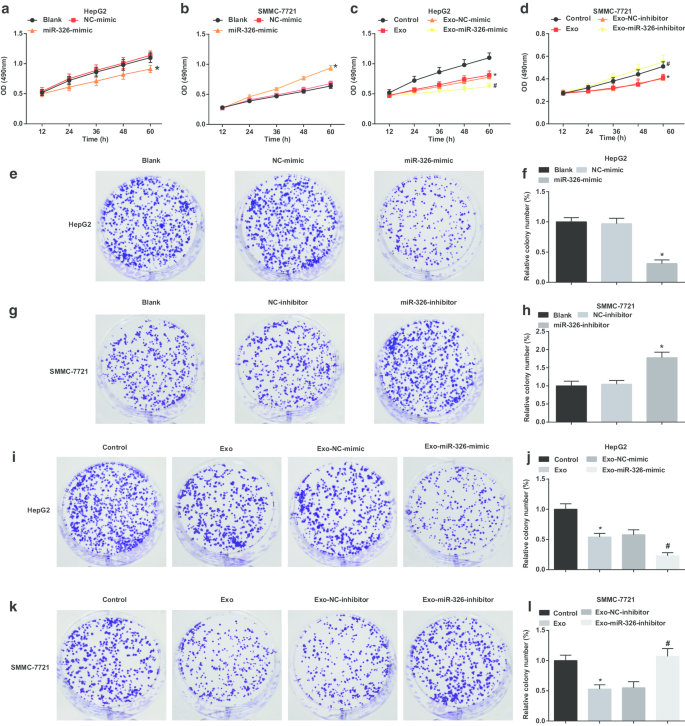
Em células SMMC-7721, knockdown de miR-326 aumentou proliferação celular e capacidade de formação de colônias (Fig. 3b, g, h). Em células SMMC-7721 tratadas com exossomos derivados de macrófagos M1, proliferação celular e capacidade de formação de colônias foram diminuídas. Exossomos derivados de macrófagos M1 transfeccionados com inibidor de miR-326 aumentaram ainda mais proliferação celular e capacidade de formação de colônias (Fig. 3d, k, l). É sugerido que miR-326 derivado de exossomos de macrófagos M1 impede proliferação de células de CHC.
miR-326 Exossomal Derivado de Macrófagos M1 Suprime Migração e Invasão de Células de CHC
Então, o efeito do miR-326 exossomal na invasão e migração de células de CHC foi examinado. Foi demonstrado que em células HepG2, restauração de miR-326 restringiu invasão e migração (Fig. 4a–c). Exossomos derivados de macrófagos M1 perturbaram células HepG2 a invadir e migrar. Invasão e migração degradaram ainda mais quando células HepG2 foram co-cultivadas com exossomos derivados de macrófagos M1 transfeccionados com mimético de miR-326 (Fig. 4g–i).
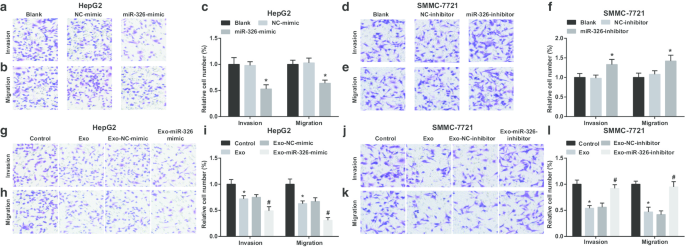
Knockdown de miR-326 resultou em aumentos em invasão e migração de células SMMC-7721 (Fig. 4d–f). Quando tratadas com exossomos derivados de macrófagos M1, células SMMC-7721 foram exibidas com invasão e migração diminuídas. No entanto, invasão e migração de células SMMC-7721 foram aumentadas após co-cultura com exossomos derivados de macrófagos M1 transfeccionados com inibidor de miR-326 (Fig. 4j–l). Implica-se que miR-326 derivado de exossomos de macrófagos M1 impede invasão e migração de células de CHC.
miR-326 Exossomal Derivado de Macrófagos M1 Promove Apoptose de Células de CHC
Ao examinar o efeito do miR-326 exossomal no ciclo celular e apoptose de células de CHC, coloração simples de PI e dupla coloração Annexin V-FITC/PI foram aplicadas. Foi ilustrado que superexpressão de miR-326 aumentou células presas na fase G0/G1, reduziu células presas nas fases S e G2/M e aumentou apoptose em células HepG2 (Fig. 5a–d). Co-cultivo com exossomos derivados de macrófagos M1 aumentou células presas na fase G0/G1, reduziu células presas nas fases S e G2/M e aumentou apoptose celular de células HepG2. Co-cultivo com exossomos de macrófagos M1 transfeccionados com mimético de miR-326 aumentou ainda mais estes efeitos (Fig. 5i–l).
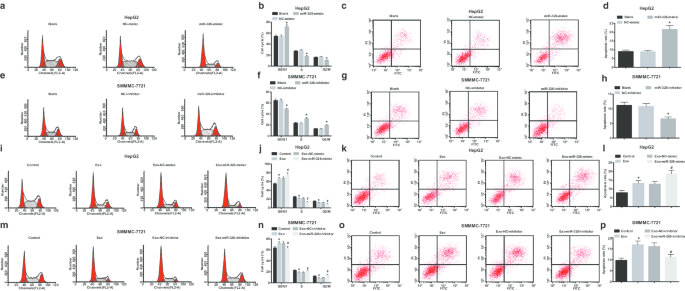
Em células SMMC-7721, down-regulação de miR-326 reduziu células presas na fase G0/G1, elevou células presas nas fases S e G2/M, e diminuiu apoptose celular (Fig. 5e–h). Exossomos derivados de macrófagos M1 não transfeccionados aumentaram células presas na fase G0/G1, reduziram células presas nas fases S e G2/M, e aumentaram apoptose celular. Exossomos derivados de macrófagos M1 transfeccionados com inibidor de miR-326 degradaram células presas na fase G0/G1, elevaram células presas nas fases S e G2/M, e diminuíram apoptose celular (Fig. 5m–p). Brevemente, resume-se que miR-326 derivado de exossomos de macrófagos M1 prende ciclo celular na fase G0/G1 e induz apoptose celular em CHC.
miR-326 Exossomal Derivado de Macrófagos M1 Diminui Expressão de CD206 e NF-κB em Células de CHC
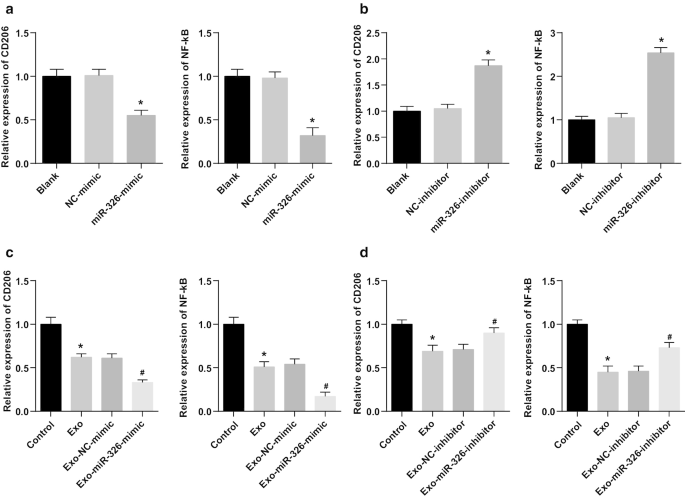
Em seguida, o mecanismo potencial do miR-326 derivado de exossomos de macrófagos M1 no progresso biológico de células de CHC foi explorado. NF-κB é o elo chave entre inflamação e câncer. Muitas proteínas regulatórias e miRNAs poderiam inibir a sinalização NF-κB excessivamente ativada para suprimir câncer [16]. Tal efeito benéfico pode incluir a polarização de macrófagos M2 em macrófagos M1. Expressão de CD206 e NF-κB em células HepG2 e SMMC-7721 foi testada por RT-qPCR. Sugeriu-se que restauração de miR-326 diminuiu expressão de CD206 e NF-κB em células HepG2, enquanto knockdown de miR-326 aumentou expressão de CD206 e NF-κB em células SMMC-7721 (Fig. 6a, b). Além disso, co-cultura com exossomos de macrófagos M1 reduziu significativamente expressão de CD206 e NF-κB em células HepG2, enquanto co-cultura com exossomos de macrófagos M1 superexpressando miR-326 diminuiu ainda mais expressão de CD206 e NF-κB. Tratado com exossomos derivados de macrófagos M1 não transfeccionados, expressão de CD206 e NF-κB foi diminuída em células SMMC-7721. Co-cultivado com exossomos derivados de macrófagos M1 transfeccionados com inibidor de miR-326, células SMMC-7721 foram caracterizadas por expressão aumentada de CD206 e NF-κB (Fig. 6c, d). Concluiu-se que miR-326 de exossomos de macrófagos M1 atuou como supressor de tumor inibindo NF-κB em células de CHC.
miR-326 de Exossomos de Macrófagos M1 Inibe Crescimento de Tumor de CHC In Vivo
Finalmente, os resultados in vivo foram validados através de xenotransplantes de tumor. Como exibido, superexpressão de miR-326 diminuiu volume e peso de tumores em células HepG2 (Fig. 7a–c). Em camundongos transplantados com células HepG2 co-cultivadas com exossomos, o tratamento com exossomos de macrófagos M1 reduziu significativamente volume e peso de tumores de células HepG2, enquanto tratamento com macrófagos M1 superexpressando miR-326 reduziu ainda mais volume e peso de tumores de células HepG2 (Fig. 7g–i).
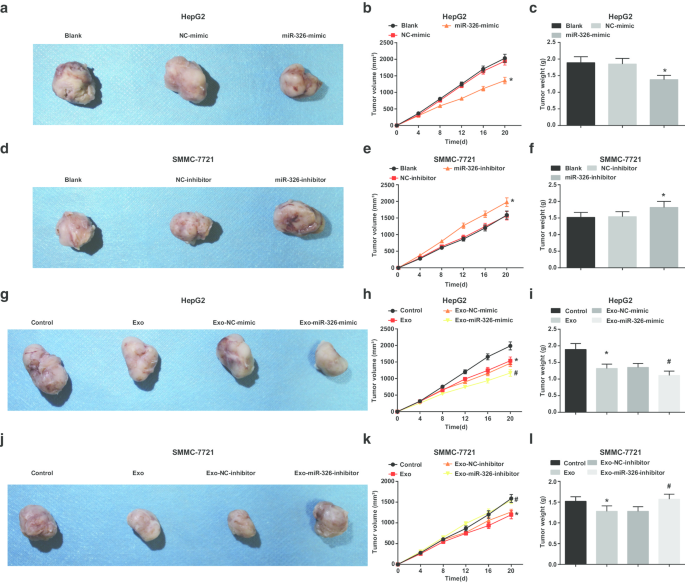
Em células SMMC-7721, supressão de miR-326 aumentou volume e peso de tumores (Fig. 7d–f). Exossomos derivados de macrófagos M1 não transfeccionados obstruíram crescimento tumoral em volume e peso de células SMMC-7721. Co-cultivado com exossomos derivados de macrófagos M1 transfeccionados com inibidor de miR-326, células SMMC-7721 foram injetadas em camundongos e causaram elevações em volume e peso do tumor (Fig. 7j–l). Em suma, miR-326 derivado de exossomos de macrófagos M1 deprimiu crescimento tumoral de CHC in vivo.
Discussão
CHC é um câncer comum caracterizado por alta morbidade e mortalidade, diagnóstico precoce e tratamento difíceis, prognóstico ruim e taxa de sobrevida de 5 anos [17]. Recentemente, um estudo destacou que o lncRNA cox-2 pouco expresso diminui a capacidade de macrófagos M1 de suprimir crescimento de células de CHC, invasividade, angiogênese, migração e promover apoptose [18]. Hu et al. discutiram que miR-326 é obviamente degradado em tecidos e linhagens de células de CHC, enquanto miR-326 down-regulado está conectado ao estágio TNM, metástase de linfonodo e diferenciação de pacientes com CHC [14]. Considera-se costumeiramente que exossomos derivados de células de CHC podem formar ambiente fértil para facilitar crescimento de células de CHC, invasividade e metástase, bem como desenvolvimento de resistência a drogas [19]. O estudo atual foi projetado para explorar o mecanismo do miR-326 exossomal na regulação de invasão e migração de células de CHC.
Nossos resultados indicaram que expressão de miR-326 diminuiu em células de CHC mas aumentou em exossomos. Um estudo recente apontou que expressão de miR-326 é diminuída em tecidos de CHC [20]. Outro estudo apresentou que expressão de miR-326 é notavelmente reduzida em linhagens de células de CHC e tecidos e sua down-regulação prevê prognóstico ruim em CHC [13]. Relata-se que miR-326 atua papel supressor de tumor e é grandemente deprimido em células de CHC [21]. Todas estas evidências mencionadas estão em linha com nossas descobertas. Um estudo alegou que em comparação com controles, expressão de miR-326 é aumentada em exossomos derivados de Tconv observados em pacientes com esclerose múltipla recorrente-remitente [11].
Outros resultados emergem de nossos dados que miR-326 exossomal altamente expresso reduziu proliferação celular, formação de colônias, migração e invasão, bem como facilitou apoptose de células de CHC in vitro e reduziu volume e peso de tumor de CHC in vivo. Foi sugerido anteriormente que crescimento de células de CHC pode ser suprimido via superexpressão de miR-326, e capacidade de migração e invasão de células de CHC são marcadamente atenuadas através de elevação de miR-326 [21]. Relata-se que expressão up-regulada de miR-326 suprime crescimento de células de CHC e invasividade, bem como estimula apoptose celular in vitro [14]. Além disso, um estudo prévio verificou que superexpressão de miR-326 diminuiu crescimento tumoral in vivo [13]. Um estudo revelou que miR-326 expresso ectopicamente atenua marcadamente crescimento celular, e suprime migração e invasividade celular em linhagens de células de câncer de pulmão de não pequenas células [22]. Além disso, encontra-se que miR-326 diminui genes profibróticos como MMP-9, implicando sua função repressiva em proliferação de células cancerígenas [23]. Também é apresentado que miR-326 reprime expressão de proteína Bcl-2 e eleva expressão de Bax para afetar apoptose [24]. Similar às nossas descobertas, existem alguns miRNAs interagindo com exossomos para desempenhar papel no desenvolvimento de CHC. Exibe-se que miR-638 exossomal altamente expresso pode reprimir proliferação de células de CHC, envolvendo impacto potencial na carcinogênese [25]. Outro estudo também prova que miR-451a exossomal derivado de células de CHC suprime angiogênese tumoral via disrupção de funções endoteliais como apoptose, formação de tubos, migração e permeabilidade [26]. Uma pesquisa prévia geralmente confirma que quando tratado com superexpressão de exossomos de miR-744, a proliferação de células de CHC é dramaticamente suprimida [27].
Conclusão
Para concluir brevemente, nosso estudo fornece evidência que miR-326 exossomal derivado de macrófagos M1 suprime proliferação, migração e invasão, bem como avança apoptose de células de CHC, fornecendo nova visão em terapia alvo inovadora para CHC. Devido ao tamanho limitado de amostra e pesquisas conhecidas limitadas, o mecanismo exato de miR-326 não é totalmente elucidado, e portanto, estudos de larga escala adicionais são necessários para ilustrar o mecanismo subjacente.
Abreviações
- CHC:
- Carcinoma hepatocelular
- miRNAs:
- MicroRNAs
- SFB:
- Soro fetal bovino
- M/CSF:
- Fator estimulador de colônia de macrófagos
- PBS:
- Salino fosfato tamponado
- DMEM:
- Meio modificado de Dulbecco Eagle
- PPAR:
- Receptor ativado por proliferador de peroxissomo
- MET:
- Microscópio eletrônico de transmissão
- NTA:
- Análise de rastreamento de nanopartículas
- CN:
- Controle negativo
- RT-qPCR:
- Reação em cadeia da polimerase de transcrição reversa quantitativa
- BCA:
- Ácido bicinconínico
- BSA:
- Albumina sérica bovina
- Exo:
- Exossomos
- ANOVA:
- Análise de variância unidirecional
Nanomateriais
- Controle de Polarização Terahertz Ultra-Largo via Metafícies Dielétricas Anisotrópicas
- Efeitos de Nanopartículas de Ouro de 15 nm na Proliferação, Apoptose e Formação de Esferoides em Células de Carcinoma de Cólon HT29 e Rim Embrionário SPEV
- Otimização de Células Solares de Perovskita MAPbI₃ com Eletrodos ITO Pulverizados em Ângulo Oblíquo
- Suporte de Nanofibras de TiO₂-Carbono Eletrofiado Melhora Catalisadores PtRu para Células a Combustível de Metanol Direto
- Lipossomos PEGilados Melhoram a Solubilidade, Farmacocinética e Citotoxicidade em Glioma da Bufalina
- Regulando Movimento Desliza-Rola de Nanotubos de Carbono Através de Funcionalização com Hidroxila
- Nanopartículas de Ouro Modulam Atividade de CYP3A4 e Toxicidade Celular em Carcinoma Hepatocelular Humano: Influência de Tamanho, Química de Superfície e Coroa Protéica
- Nanopartículas de Fluoreto de Terras Raras Desencadeiam Proliferação de Células Tumorais via Ativação de Integrina Mediada por Dipolo Elétrico
- Tratamento Controlado com Peróxido Melhora Comutação de Baixa Potência em Células de Metalização Programável Baseadas em Peróxido de Zinco
- Co-Entrega Direcionada de 5-Fluorouracil e LY294002 via Nanopartículas Lipídicas PEGiladas Aumenta Eficácia Antitumor em Carcinoma Escamoso Esofágico