



Nanopartículas de Sorafenib Direcionadas por hGC33 Inibem Sinergicamente Hepatoma via Supressão da Via Wnt
Resumo
A entrega de inibidores específicos de tumor é um desafio no tratamento do câncer. Nanopartículas modificadas com anticorpos podem entregar seus fármacos carregados a células tumorais que superexpressam antígenos tumorais específicos. Aqui, construímos nanopartículas de polímero polietileno glicol-b-PLGA carregadas com sorafenib modificadas com anticorpo hGC33 para glicpican-3 (GPC3+), uma proteína de membrana superexpressa em carcinoma hepatocelular. Descobrimos que NPs modificadas com hGC33 (hGC33-SFB-NP) direcionaram células de carcinoma hepatocelular (CHC) GPC3+ ligando-se especificamente a GPC3 na superfície das células de CHC, inibiram transdução de sinal induzida por Wnt, e inibiram células de CHC em G0/1 por down-regulação da expressão de ciclina D1, assim atenuando migração de células de CHC inibindo transição epitelial-mesenquimal. hGC33-SFB-NP inibiu migração, progressão do ciclo e proliferação de células de CHC inibindo a via Ras/Raf/MAPK e a via Wnt em tandem com moléculas GPC3, respectivamente. hGC33-SFB-NP inibiu crescimento de câncer de fígado in vivo e melhorou taxa de sobrevida de camundongos portadores de tumor. Concluímos que hGC33 aumenta direcionamento de SFB-NP a células de CHC. hGC33-SFB-NP inibe sinergicamente progressão de CHC bloqueando a via Wnt e a via Ras/Raf/MAPK.
Introdução
Glicpican3 (GPC3) é um proteoglicano de sulfato de heparana expresso em superfícies celulares através de mecanismo envolvendo âncoras de glicerofosfatidilinositol [1]. Embora GPC3 seja expresso em uma variedade de tecidos durante desenvolvimento, sua expressão é pelo menos parcialmente inibida na maioria dos tecidos adultos por metilação de DNA na região promotora [2]. No entanto, proteína GPC3 é superexpressa em cerca de 70% de pacientes com carcinoma hepatocelular (CHC) [3, 4] e estimula transdução de sinal Wnt clássica [5] através de interação com ligante Wnt, que promove ligação Wnt/frizzled para promover crescimento de CHC [6]. Ativação da via de sinalização Wnt clássica é um dos eventos mais frequentes associados com transformação maligna de CHC [7, 8]. Baseado na capacidade de GPC3 de aumentar sinalização Wnt, hipotetizamos que superexpressão de GPC3 promove crescimento de CHC estimulando a via Wnt clássica.
Anticorpo monoclonal terapêutico que reconhece um epítopo na porção C-terminal de GPC3 (524–563) (hGC33), que reconhece o epítopo C-terminal de GPC3 (524–563), inibe crescimento de tumor em xenotransplantes subcutâneos de HepG2 e Huh-7 em camundongos [9, 10]. hGC33 foi humanizado por transplante de região de decisão complementar, e seu efeito anticancerígeno é tão eficaz quanto hGC33 para xenotransplante de HepG2, e hGC33 tem sido usado em ensaios clínicos [11]. Estes resultados sugerem que hGC33 tem importante atividade antitumoral, e tratamento anti-GPC3 inibirá diretamente proliferação e/ou sobrevivência de células de CHC bloqueando Wnt e/ou outras vias de sinalização.
No entanto, devido à patogênese complexa de CHC, a eficácia de bloquear GPC3 sozinho é limitada [12]. Portanto, explorar o mecanismo detalhado de patogênese de CHC e identificar biomarcadores promissores para diagnóstico e prognóstico de CHC pode ajudar a fornecer alvos terapêuticos eficazes e melhorar prognóstico de pacientes. Anticorpos anti-GPC3 foram propostos para aumentar sensibilidade de CHC a agentes quimioterápicos [13]. A atividade antitumoral de hGC33 em combinação com drogas quimioterápicas padrão foi avaliada recentemente [14]. Sorafenib é um novo fármaco oral direcionado para CHC que pode inibir diretamente proliferação de células tumorais bloqueando a via de sinalização celular mediada por RAF/MEK/ERK para conter crescimento tumoral [15, 16]. No entanto, a distribuição não direcionada de sorafenib in vivo e sinais Wnt anormalmente ativados em CHC limitam a eficácia do fármaco e aumentam seus efeitos colaterais [14,15,16]. Wnt liga-se a receptores na família Frizzled para ativar transdução de sinal intracelular que regula proliferação celular, apoptose e migração celular, e causa resistência a drogas em muitos tumores, como CHC [17,18,19].
Em modelos de xenotransplante de HepG2, a combinação de hGC33 e sorafenib é mais eficaz em inibir crescimento tumoral do que sorafenib sozinho [15], e entrega de fármacos com nanocarregadores poliméricos tem recebido muita atenção no tratamento do câncer. Nanocarregadores carregados com fármacos anticancerígenos podem prevenir distribuição inespecífica e degradação inespecífica in vivo, melhorar biodisponibilidade do fármaco e direcionamento antitumoral, e simplificar avaliação de farmacocinética e tratamento [15, 16]. Em uma variedade de nanopartículas baseadas em polímeros, formulações baseadas em poli(ácido lático-co-glicólico) (PLGA) são consideradas carregadores de fármacos ideais e seguros [17, 18]. A este respeito, poli(etileno glicol)-b-poli(d,l-lactida-co-glicolida) (PEG-b-PLGA) são baseados em copolímeros de polietileno glicol e PLGA, que são seguros e não tóxicos após hidrólise, e foram aprovados pela Food and Drug Administration dos EUA [19,20,21,22]. Portanto, injeção intravenosa com nanocarregador de copolímero PEG-b-PLGA é uma estratégia promissora para alcançar entrega direcionada e aumentar eficácia. Além disso, a aplicação de anticorpo específico hGC33 contra moléculas GPC3 na membrana de células de CHC não apenas pode melhorar entrega de nanofármaco direcionado in vitro e in vivo [18, 19], mas também bloquear Wnt e/ou outras vias de sinal conectadas com GPC3, inibir proliferação e/ou sobrevivência de células cancerígenas, e pode alcançar atividade antitumoral sinérgica.
Neste estudo, exploramos se nanopartículas de copolímero PEG-b-PLGA modificadas com anticorpo hGC33 podem facilitar entrega de sorafenib (hGC33-SFB-NP) a CHC in vivo e in vitro, e melhorar eficiência de tratamento de CHC através de direcionamento ativo de CHC para alterar farmacocinética do fármaco. De acordo com tamanho de partícula, potencial zeta, morfologia de partícula, eficiência de encapsulamento de fármaco, capacidade de carga de fármaco e liberação de fármaco in vitro, a NP direcionada foi caracterizada de forma abrangente. Capacidade de direcionamento in vitro é caracterizada por captação celular de células de hepatoma HepG2. A biodistribuição e efeito terapêutico sinérgico de hGC33-SFB-NP em CHC foram avaliados comparando sorafenib e SFB-NP. Nossos resultados demonstraram que hGC33-SFB-NP pode direcionar CHC GPC3+. Pode inibir progressão do ciclo celular, proliferação celular e invasão tumoral inibindo vias de sinal Wnt e Ras/Raf/MAPK e inibir sinergicamente progressão de câncer de fígado.
Materiais e Métodos
Materiais
O anticorpo hGC33, 3-(4,5-dimetiltiazol-2-il)-2,5-difeniltetrazólio brometo (MTT), 4',6-diamidino-2-fenilindol, dihidrocloreto (DAPI), 5,5',6,6'-tetracloro-1,1',3,3'-tetraetil-benzimidazolil carbocianina iodeto (JC-1), e dimetilsulfóxido (DMSO) foram obtidos da Sigma—Aldrich, Inc. (St. Louis, MO). 1-(3-dimetilaminopropil)-3-etil-carbodiimida hidrocloreto e N-hidroxisuccinimida foram obtidos da Qiyun Biotech (Guangzhou, China). O kit de quantificação de proteína de ácido bicinconínico (BCA), cumarina-6, e kit de detecção de apoptose Annexin V-FITC/PI foram comprados da Beyotime Biotechnology (Shanghai, China). Copolímero dibloco PEG-b-PLGA-maleimida (mal-PEG-b-PLGA; 25.000–30.000 Da, PLGA, LA:GA, p/p; PEG, 13–15%) foi comprado da Polyscitech (West Lafayette, IN, EUA). Kit de anticorpo PI3K (9655#), kit de anticorpo p-Akt (9916#), kit de anticorpo mTOR (9964#), kit de anticorpo família Bcl-2 (9942#), kit de anticorpo apoptose (9915#), e anticorpos secundários anti-coelho e anti-camundongo de cabra foram comprados da Cell Signal Technology (Danvers, MA, EUA); ciclina B1 e quinase dependente de ciclina foram comprados da Abcam Biological Technology (EUA). Anticorpos para fosfo-Rb, ciclina D1, quinase checkpoint 1 (CHK1), P53, gene de suscetibilidade ao câncer de mama 1 fosforilado (p-BRCA1), RAD51, citocromo C, e metaloproteinase de matriz (MMP2 e MMP9) foram comprados da Abcam (EUA). Todos os outros produtos químicos, reagentes e solventes de grau analítico são obtidos de fornecedores padrão e foram usados sem purificação adicional.
Células e Animais
Linhagem de células de CHC HepG2 (obtida da coleção de cultura de tipo americana (Manassas, VA, EUA) foi cultivada em meio DMEM (Invitrogen, Carlsbad, CA, EUA) suplementado com 10% SFB (HyClone, Logan, UT, EUA) e 80 U/ml penicilina e 80 μg/ml estreptomicina em atmosfera umidificada de 5% CO2 a 37 °C. Camundongos nude BALB/C, pesando 20–22 g (5–6 semanas) foram fornecidos por Nanjing Junke Biotechnology Co., Ltd. (China). Camundongos nude BALB/C foram criados em sala SPF. Todos os cuidados e tratamentos com animais foram realizados de acordo com os requisitos de cuidado animal da Universidade de Ciência e Tecnologia de Anhui. Todos os protocolos experimentais foram revisados e aprovados pelo comitê de ética de experimentos com animais da Universidade de Ciência e Tecnologia de Anhui (Aprovação Nº: 2019dw013).
Preparação de NPs
Para preparar NPs, mal-PEG-b-PLGA e SFB ou cumarina-6 foram pesados e dissolvidos na fase orgânica (3:2 v/v diclorometano/acetona). A solução foi adicionada a uma solução de álcool polivinílico (PVA) (5% p/v) gota a gota com vortex contínuo. A mistura foi sonicada intermitentemente com sonicador de sonda (potência de saída de 550 W, 8 vezes) em gelo para criar emulsão óleo-água. A emulsão foi adicionada a uma solução de PVA (1% p/v) com agitação magnética. NPs de SFB e cumarina-6 foram coletadas por centrifugação a 8000 rpm por 30 min e lavadas três vezes em água Milli-Q.
Para gerar hGC33-NP por ligações tioéter formadas pela reação de maleimida com resíduos sulfidrila livres no anticorpo hGC33, anticorpo hGC33 foi misturado com NPs funcionalizadas com maleimida na razão molar de 5:1 (hGC33: mal-PEG-b-PLGA) e incubado a 4 °C por 16 h com agitação contínua. hGC33 foi conjugado às NPs através da reação de grupos sulfidrila no anticorpo hGC33 com grupos maleimida das cadeias PEG. Anticorpos não conjugados foram removidos por passagem através de colunas Sepharose CL-4B. Conjugação eficiente de proteína foi confirmada com kit BCA (Thermo Fisher Scientific, Waltham, MA, EUA).
Caracterização de Nanopartículas (NPs)
Morfologia, Tamanho de Partícula, Eficiência de Encapsulamento (EE), e Estabilidade de NPs
A morfologia de NPs foi avaliada com microscopia eletrônica de transmissão (MET, H-600; Hitachi, Tokyo, Japão). NPs livres de fármaco hGC33-NPs e NPs livres de fármaco foram registradas por espectrofotômetro FTIR (Thermo Nicolet, Madison, WI, EUA) usando brometo de potássio. O tamanho médio de partícula e potencial zeta de NPs foram caracterizados com Malvern Zetasizer ZEN3600 Nano ZS (Malvern Instruments, Malvern, Reino Unido) a 20 °C. A eficiência de encapsulamento de fármaco (EE) e eficiência de conteúdo de carga de fármaco (LC) foram avaliadas por ultrafiltração. Amostras foram carregadas em dispositivo de ultrafiltração (100 kMWCO; Sartorius, Göettingen, Alemanha) e centrifugadas a 8000 rpm por 25 min a 4 °C para remover fármaco livre. O mesmo volume de cada amostra foi dissolvido em acetonitrila para confirmar quantidade total de fármaco. A concentração foi medida por cromatografia líquida de alta eficiência. O comprimento de onda de absorção foi 266 nm. A seguinte fórmula foi usada para calcular EE (%) das NPs: (peso de fármaco encapsulado/peso total de fármaco) × 100%. LC (%) foi calculado como (peso de fármaco encapsulado/peso de NPs) × 100%. Para entender estabilidade de NPs à temperatura ambiente, a mudança no tamanho de NPs foi avaliada por espalhamento de luz dinâmico (DLS) em pontos de tempo predeterminados (0,5, 1, 2, 4, 8, 12 h, 16 h, 20 h, e 24 h) a 25 °C.
Liberação de Fármaco In Vitro e Ensaio de Captação Celular
O fármaco de NPs foi investigado usando bolsas de diálise com corte de peso molecular de 10 kDa. Brevemente, 1 mL de NPs foi carregado em bolsa de diálise (MWCO 8.000–10.000 Da; Spectrum Labs Inc., CA, EUA). As bolsas de diálise foram imersas em PBS e agitadas com agitador magnético a 25 °C. Os perfis de liberação de fármaco de NPs foram medidos em 100 mL de tampão fosfato salino 0,2 M (PBS; pH = 7,4) por 7 dias. A concentração de fármaco nas amostras foi medida com cromatografia líquida de alta eficiência. Em estudos subsequentes, hGC33-cumarina 6-NP com mesmo tamanho de partícula que hGC33-SFB-NP foi usado para avaliar direcionamento de hGC33-SFB-NP. HepG2 (GPC3+), e Li-7 (GPC3−) foram incubados com hGC33-cumarina 6-NP por 0,5, 2, ou 4 h a 37 °C em 5% CO2, respectivamente. As células co-cultivadas foram lavadas e fixadas com 4% formaldeído por 10 min; os núcleos celulares foram corados com 5 μg/mL Hoechst 33.342 por 15 min para localizar NPs intracelulares. Microscopia confocal para analisar imagens intracelulares de nanopartículas foi analisada com microscopia confocal (Olympus FV1000; Olympus Corporation, Tokyo, Japão).
Efeito Celular In Vitro
A citotoxicidade de hGC33 livre (Ab), SFB livre, hGC33-null-NP, ou hGC33-SFB-NP foi determinada usando ensaio MTT. Células HepG2 (GPC3+) e Li-7 (GPC3−) em fase logarítmica foram semeadas em placa de 96 poços a densidade de 4000 células por poço seguida de incubação por 48 h a 37 °C em 5% CO2. As células foram tratadas com hGC33, SFB livre, hGC33-null-NP, ou hGC33-SFB-NP por 48 h a 37 °C em 5% CO2. Após co-cultivo por tempo definido, atividade anti-proliferação celular foi determinada por ensaio MTT como descrito [20]. A absorbância de cada poço foi medida a 490 nm e calculado metade da concentração inibitória máxima (IC 50) com SPSS 17.0.
Medida de Capacidade de Invasão Celular
Células em fase de crescimento logarítmico foram semeadas em placas de 6 poços a densidade de 5 × 10⁴ células/poço, arranhadas com ponta de sucção, e substituídas com meio de cultura livre de soro. Cicatrização de ferida foi registrada a 0 h, 24 h, e 48 h no grupo controle e grupo experimental. Ao mesmo tempo, o mesmo número de células foi inoculado em câmaras Transwell e tratado com hGC33 livre, SFB livre, hGC33-null-NP, ou hGC33-SFB-NP. Quinhentos microlitros de meio 10% SFB foi adicionado na câmara inferior. Após incubação por 24 h, a câmara Transwell foi retirada, e as células foram fixadas com 4% paraformaldeído, e coradas com 0,1% violeta de cristal. O tamanho de cicatrização de ferida e número de células de migração foram calculados para avaliar capacidade de migração.
Determinação do Ciclo Celular
Após incubação durante a noite em placas de 6 poços, as células foram tratadas com hGC33 livre (Ab), SFB livre, hGC33-null-NP, ou hGC33-SFB-NP por 24 h, então coletadas e fixadas com etanol. Após coloração com iodeto de propídio, citometria de fluxo foi realizada, e o ciclo celular foi analisado com modifit 3.0 (Verity Software House, Topsham, ME).
Western Blotting
Para avaliar status de ativação de via de sinal e expressão de moléculas alvo, as células foram incubadas durante a noite em placas de 6 poços, e hGC33 livre, SFB livre, hGC33-null-NP, ou hGC33-SFB-NP foram aplicados por 24 h. As células de cada grupo de tratamento foram coletadas, e proteína foi extraída e medida. A concentração de proteína foi medida e calibrada com kit de proteína BCA (Biosharp, Hefei, China). Proteína das amostras foi separada por eletroforese em gel de poliacrilamida de dodecil sulfato doze, transferida para membrana PVDF, e selada com leite desnatado. O primeiro anticorpo (diluído 1:1000) foi incubado durante a noite a 4 °C, e os segundos anticorpos (1:2000) foram incubados por 1 h à temperatura ambiente. As bandas foram visualizadas com substratos ECL (Thermo Fisher Scientific Waltham, MA, EUA), e as imagens foram exibidas por sistema de análise de imagem de gel, e β-actina foi usada como controle.
Atividade Antitumor In Vivo
A inibição de hGC33 livre, SFB livre, hGC33-null-NP, SFB-NP, e hGC33-SFB-NP no crescimento de CHC in vivo foi determinada. De acordo com regulamentos e diretrizes sobre saúde animal do comitê de ética da Universidade de Tecnologia de Anhui, todos os experimentos foram conduzidos em camundongos BALB/c em gaiolas em sala com controle de temperatura (23 ± 2 °C) com ciclo luz/escuro de 12 h/12 h. Suspensão de 50 μl contendo 5 × 10⁶ células HepG2 vivas foi injetada subcutaneamente no abdômen direito de camundongos fêmeas BALB/c de 5 semanas (20–22 g). Quando o volume do tumor atingiu cerca de 50 mm3, os camundongos foram aleatoriamente divididos em 6 grupos (10 camundongos em cada grupo). Controle salino normal NS (200 mg/kg NP nulo em 200 μL PBS), hGC33-null-NP (hGC33-null-NP em 200 μL PBS, equivalente a hgc33 = 100 μg/kg/vez), hGC33 livre (hGC33 em 200 μL PBS, 100 μg/kg/vez), SFB livre (dose SFB: 8 mg/kg/vez), SFB-NP (dose SFB: 8 mg/kg/vez), e hGC33-SFB-NP (equivalente a SFB = 8 mg/kg/vez, hGC33 = 100 μg/kg/vez) foram injetados via veia da cauda a cada 2 dias por 10 vezes. O peso e tamanho do tumor dos camundongos foram medidos a cada quatro dias. A fórmula de cálculo do volume do tumor foi volume = 0,5 × L × W2, onde L e W representam comprimento e largura do tumor, respectivamente. Quatro semanas após administração, os animais foram anestesiados com éter dietílico, e o tamanho e peso do tumor foram medidos. Além disso, tumor, coração, fígado, rim, pulmão e baço foram removidos, fixados com solução de paraformaldeído 4%, incluídos em parafina, seccionados, e corados com hematoxilina e eosin para avaliar mudanças histológicas por microscopia digital.
Análise Estatística
Dados são apresentados como média ± desvio padrão (DP) e foram avaliados por análise de variância com SPSS 18.0. Comparações estatísticas pareadas foram realizadas usando teste t de Student bicaudal. Diferenças foram consideradas estatisticamente significantes para P < 0,05.
Resultados
Caracterização de NPs e Liberação de Fármaco In Vitro
Como o diâmetro e propriedades de superfície de NP afetam captação celular, liberação de fármaco e distribuição de NP in vivo, caracterizamos a NP preparada com parâmetros correspondentes. A morfologia, tamanho de partícula e distribuição de tamanho de partícula de polímeros SFB-NP, hGC33-null-NP, e hGC33-SFB-NP são resumidos na Fig. 1. A morfologia de hGC33-SFB-NP observada por microscópio eletrônico de transmissão (Fig. 1a) mostra núcleos rígidos com bordas difusas, o que indica que hGC33 está presente na superfície de NPs. Os tamanhos de partícula de SFB NP, hGC33-null-NP, e hGC33-SFB-NP variaram de 100 a 150 nm e tiveram distribuição de tamanho de partícula unimodal típica. O diâmetro médio de hGC33-SFB-NP (120,2 ± 10,2 nm) foi ligeiramente maior que o de hGC33-null-NP, SFB-NP, e NP nulo (Fig. 1a, Tabela 1). Filmes esféricos finos e pouco claros com superfície única estavam presentes na superfície de hGC33-SFB-NP e hGC33-null-NP, o que indicou que anticorpo hGC33 estava presente na superfície de NPs. O tamanho aumentado para hGC33-SFB-NP e hGC33-null-NP confirmou a existência de filme hGC33. A síntese de hGC33-SFB-NP foi confirmada com 1H-NMR (Fig. 1b) antes da preparação de NPs. Os picos a 5,2 ppm e 1,58 ppm foram atribuídos a prótons -CH3 de ácido lático; o pico a 4,8 ppm foi atribuído a -OCH2- de ácido glicólico; e o pico a 3,6–3,8 ppm foi atribuído a prótons -CH2CH2O- de unidades repetidas de PEG. Química de superfície de PEG-b-PLGA e Ab-PEG-b-PLGA NPs também foi estudada por espectroscopia FTIR (Fig. 2c). No espectro do polímero PEG-b-PLGA, uma banda forte em cerca de 1750 cm−1 originou-se do estiramento de grupos carbonila (C=O) na cadeia PLGA. Uma banda a 2880 cm−1 foi devida a estiramento de um grupo –CH na cadeia PEG. Ao mesmo tempo, um pico apareceu a 2520 cm−1 que atribuímos ao pico de estiramento -SH do anticorpo hGC33. Os resultados de 1H NMR e FTIR indicaram que anticorpo foi enxertado na estrutura principal dos polímeros PEG-b-PLGA.
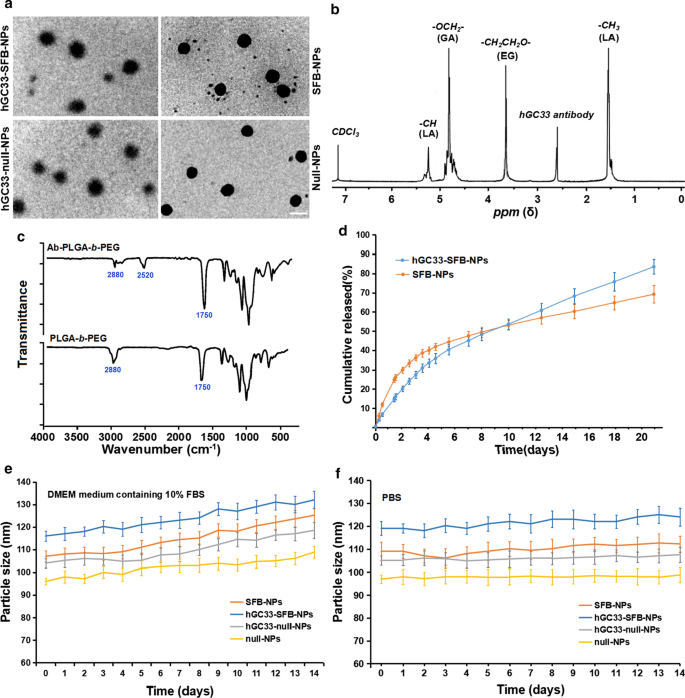
Curiosamente, nanopartículas hGC33-SFB-NP e SFB-NP em meio DMEM contendo 10% SFB (pH = 7,4) tiveram liberação rápida de fármaco até cerca de 4 dias, então liberação de fármaco relativamente lenta e estável; a liberação cumulativa de SFB de hGC33-SFB-NP e SFB-NP por 20 dias foi cerca de 77% e 65%, respectivamente (Fig. 1d). A diferença pode ser devida à molécula hidrofílica na superfície da matriz PEG-b-PLGA, que pode acelerar degradação das nanopartículas aumentando hidratação e promovendo hidrólise. Para determinar estabilidade das NPs preparadas, hGC33-SFB-NP, hGC33-null NP, null-NP, e SFB-NP foram colocados em meio DMEM contendo 10% SFB (pH = 7,4) e em PBS (pH = 7,4). Os tamanhos das várias NPs permaneceram estáveis por mais de 2 semanas. SFB foi liberado de hGC33-SFB-NP de maneira sustentada e estável por 14 dias, mas houve mudança modesta no tamanho das partículas em meio DMEM comparado com aquele em 10% SFB (Fig. 1e, f). Estabilidade de hGC33-SFB-NP seria apropriada para SFB ter papel biológico sustentado.
Grande potencial zeta pode causar forte interação eletrostática repulsiva entre NP e manter estabilidade do sistema de dispersão de NP [23, 24]. Como mostrado na Tabela 1, os potenciais zeta de hGC33-SFB-NP, hGC33-null-NP, e SFB-NP são −18,2 ± 2,2 mV, −18,5 ± 1,8 mV, e −15,9 ± 2,1 mV, respectivamente, que podem ser causados pelas cargas negativas geradas pelo grupo aldeído, grupo carboxila, e grupo fosfato na glicoproteína do anticorpo hGC33. NPs carregadas negativamente podem levar a alta estabilidade de suspensão de NP. Além disso, como a superfície das células é carregada negativamente em ambientes fisiológicos normais, as NPs preparadas repelem células com baixa carga e são menos tóxicas a tecidos e células. Além disso, a distribuição de tamanho de null-NP e SFB-NP (índice de polidispersidade [IPD] 0,18 e 0,19, respectivamente) foi ligeiramente mas não significativamente menor que a de hGC33-null-NP (IPD = 0,21) e hGC33-SFB-NP (IPD = 0,23). Assim, o tamanho das nanopartículas tem boa uniformidade. O tamanho de partícula, distribuição de tamanho de partícula e potencial zeta de NP são mostrados na Tabela 1 de acordo com os resultados de eficiência de encapsulamento de SFB e conteúdo de carga. O anticorpo hGC33 não conjugado de GPC3 foi removido por ultracentrifugação, e a eficiência de ligação de anticorpo hGC33 a NPs foi avaliada. Análise de proteína BCA mostrou que a eficiência de ligação de anticorpo hGC33 a NPs foi 79,5% ± 2,9%.
hGC33-Cumarina 6-NP Direciona Efetivamente Células de CHC HepG2 GPC3+
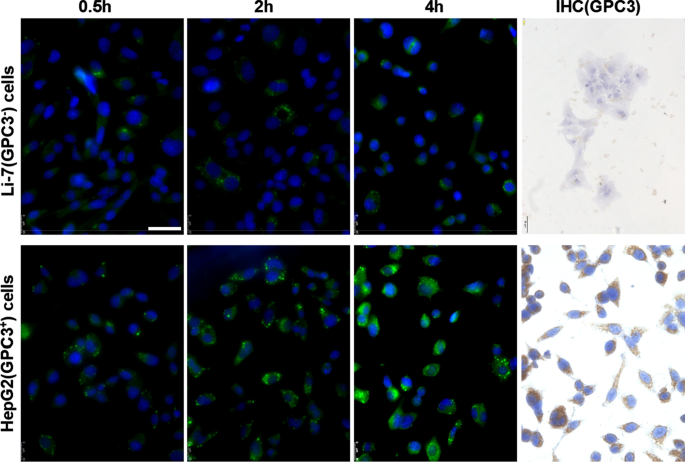
Para descobrir se o anticorpo hGC33 das nanopartículas ainda tem capacidade de direcionar especificamente GPC3, usamos células HepG2 GPC3+ e Li-7 GPC3− como células-alvo e hGC33-cumarina 6-NP como nanopartículas rastreadoras, e incubamos as diferentes células por 2 h, 4 h, e 8 h. As células foram lavadas com PBS 3 vezes e reagidas com DAPI para colorir o núcleo. As células foram fixadas e fotografadas com microscópio de fluorescência Leica (DMi8, Alemanha). Foi encontrado que a fluorescência verde em células HepG2 foi significativamente maior que em células Li-7 no mesmo tempo de incubação (Fig. 2), indicando que a quantidade de hGC33-cumarina 6-NP entrando em células HepG2 foi significativamente maior que em células Li-7. Os resultados documentaram que o anticorpo hGC33 em hGC33-Cumarina6-NP ainda tinha capacidade de direcionar GPC3 e mediar internalização de nanopartículas. A expressão de GPC3 em células HepG2 e Li-7 foi examinada com fluorescência indireta e coloração citoquímica. Os resultados mostraram que células HepG2 superexpressavam GPC3, enquanto células Li-7 não expressavam GPC3 (Fig. 2).
hGC33-Null-NP Inibe Proliferação de Células HepG2
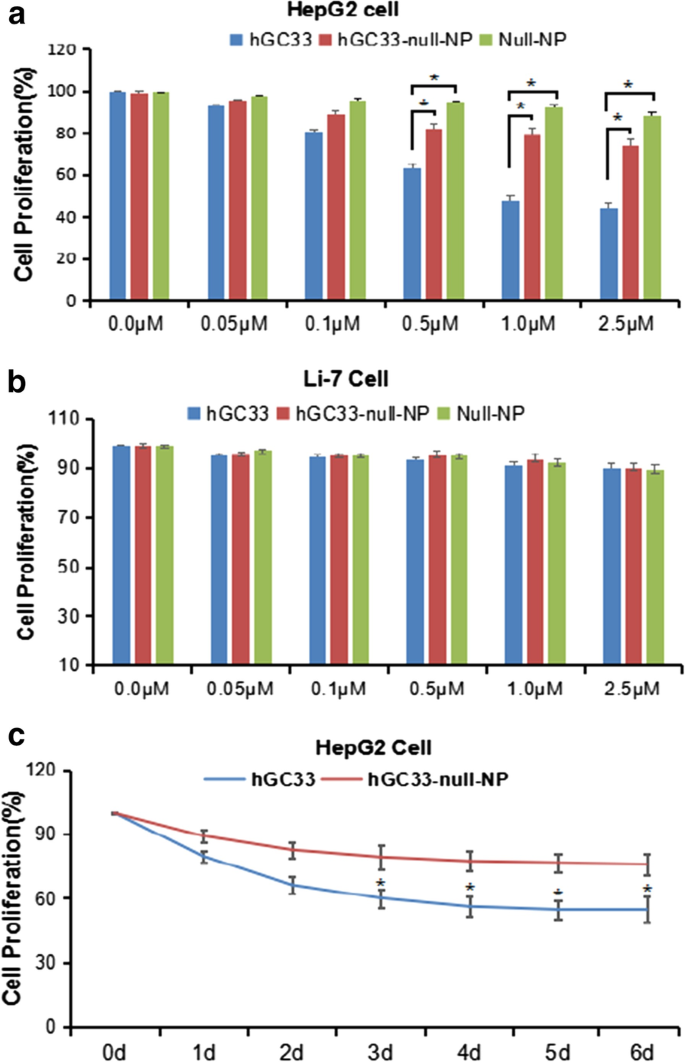
Para determinar se NP modificada com hGC33 (hGC33-null-NP) poderia inibir crescimento de CHC, medimos inibição de crescimento celular de linhagem de células de CHC GPC3 positiva HepG2 e linhagem de células GPC3 negativa Li-7. Encontramos que tanto hGC33-null-NP quanto hGC33 inibiram crescimento da linhagem de células de CHC GPC3-positiva HepG2 após 24 h de tratamento, mas hGC33 teve efeito inibitório mais significativo em células HepG2 que hGC33-null-NP (Fig. 3a); em contraste, hGC33-null-NP e hGC33 não afetaram crescimento da linhagem de células GPC3-negativa Li-7 (Fig. 3b). O curso de tempo representativo de hGC33-null-NP (equivalente a 0,1 μM hgc33) e hGC33 (0,1 μM) na proliferação de células HepG2 é ilustrado na Fig. 3c. Como hGC33 é um peptídeo C-terminal que reconhece GPC3, hGC33 é superior a hGC33-null-NP em inibir HepG2. Os resultados sugerem que a molécula hGC33 em hGC33-null-NP pode ter efeito de bloqueio espacial, que pode afetar capacidade de ligação de hGC33 a epítopos.
hGC33-Null-NP Inibe Ciclo Celular de Células HepG2
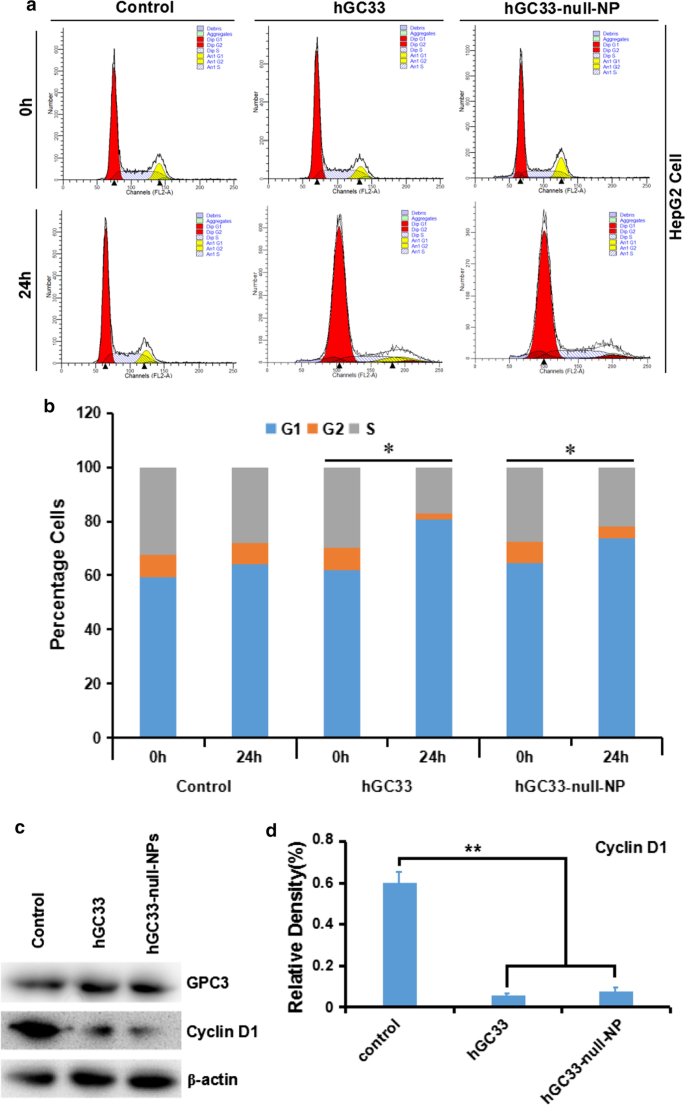
Para entender o mecanismo da atividade molecular do anticorpo hGC33 modificado em nanopartículas hGC33-null-NP, estudamos progressão do ciclo celular de HepG2 tratado com hGC33-null-NP. Na linhagem de células HepG2, hGC33-null-NP e hGC33 aumentaram significativamente a proporção de células em G1 (Fig. 4a, b), indicando que tanto hGC33-null-NP quanto hGC33 poderiam induzir parada do ciclo celular na fase G1. Além disso, hGC33-null-NP e hGC33 poderiam down-regular significativamente expressão de ciclina D1 em células HepG2 (Fig. 4c, d).
Ativação de Wnt em Células HepG2, Huh-7 e Li-7
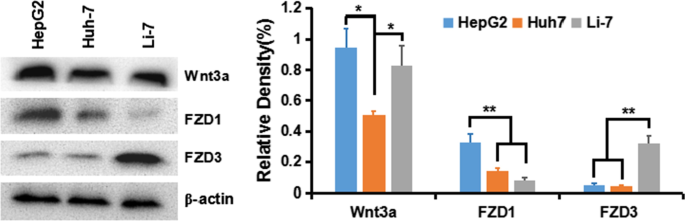
Para entender ativação do sinal Wnt/β-Catenina clássico em células de CHC, primeiro detectamos expressão de ligante Wnt e proteína receptor frizzled (FZD ou Frz) em várias linhagens de células de CHC: HepG2 (GPC3++), Huh-7 (GPC+), e Li-7 (GPC3−). Os resultados mostraram que Wnt3a e receptor FZD de transdução da via β-Catenina foram expressos em todas as linhagens celulares, especialmente em células HepG2 e Huh-7 (Fig. 5).
hGC33-Null-NP Inibe Proliferação Celular Dependente de Transdução de Sinal Wnt Induzida por Wnt3a
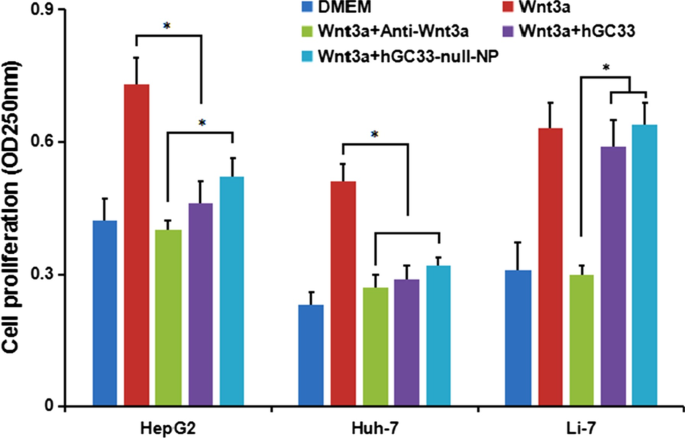
Alguns estudos mostraram que a parte extracelular de GPC3 pode ser um co-receptor de Wnt, que promove ativação e transdução de sinal Wnt/β-Catenina. Portanto, quando células HepG2 (GPC3+), Huh-7 (GPC3+), e Li-7 (GPC3−) foram co-incubadas com hGC33 e hGC33-null-NP, a ativação do sinal Wnt/β-catenina foi bloqueada por hGC33 e hGC33-null-NP, e proliferação de HepG2 e Huh-7, mas não Li-7, em meio condicionado por Wnt3a foi inibida. Que proliferação de células Li-7 muito provavelmente é devida à ausência de GPC3 na superfície de células Li-7 (Fig. 6). Nossos resultados indicam hGC33 e hGC33-null-NP nanopartículas ligam-se especificamente a moléculas GPC3 na membrana celular. hGC33 e hGC33-null-NP neutralizam parcialmente a atividade mitogênica de Wnt3a e inibem a via de sinalização Wnt/β-catenina. No entanto, a inibição de proliferação por nanopartículas hGC33-null-NP foi menor que a de hGC33. Talvez a estrutura espacial das nanopartículas interfira com hGC33-null-NP e limite a função da molécula hGC33 nas nanopartículas para que não possam bloquear completamente a interação entre GPC3 e Wnt3a.
hGC33-Null-NP Inibe Transdução de Sinal Induzida por Wnt3a em Células HepG2 e Huh-7
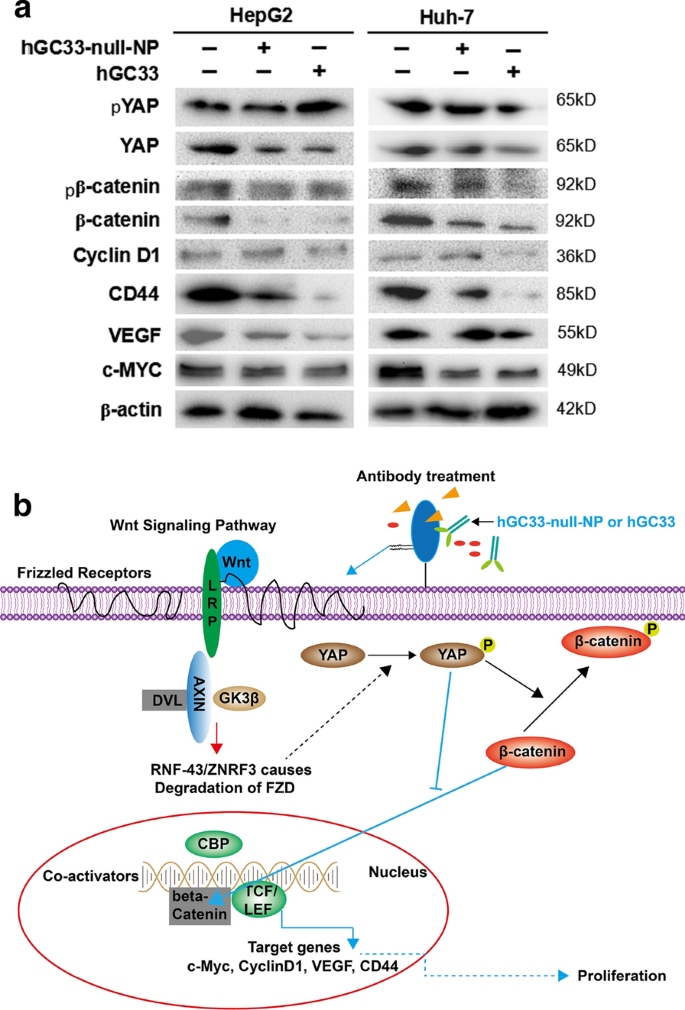
Para entender o efeito de hGC33-null-NP na sinalização Wnt/β-catenina em células de CHC, extraímos as proteínas de células HepG2 e Huh-7 tratadas com hGC33 ou hGC33-null-NP. Os resultados de western blot mostraram que após tratamento com hGC33-null-NP, os níveis de pYAP e pβ-catenina foram aumentados, mas os níveis de YAP e β-catenina foram diminuídos. Além disso, os níveis de ciclina D1, CD44, VEGF, e c-MYC no grupo hGC33-null-NP foram menores que os do grupo controle, mas o nível foi menor que com tratamento de hGC33. Efeitos similares foram observados em células HepG2 e Huh-7, como mostrado na Fig. 7.
hGC33-SFB-NP ou hGC33 Atenua Migração de Células de CHC Inibindo Transição Epitelial-Mesenquimal (TEM)
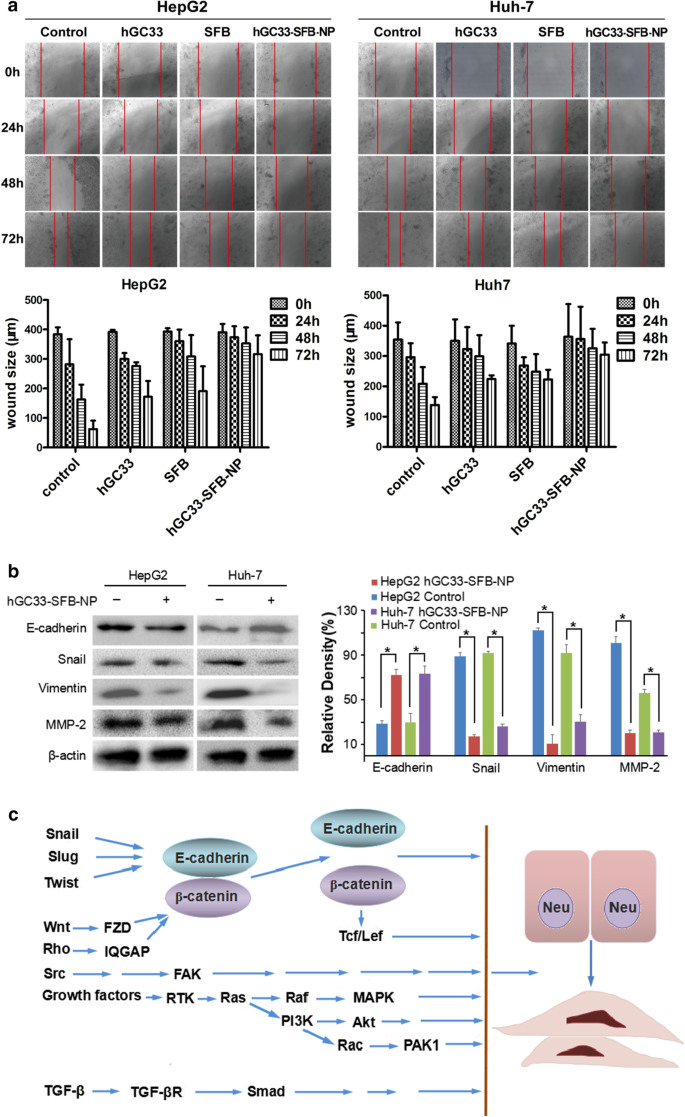
CHC é um dos cânceres mais letais do mundo, e sua incidência está aumentando constantemente. Sorafenib é o único tratamento padrão aprovado para pacientes com CHC avançado, pois mostrou melhorar taxa de sobrevida destes pacientes. No entanto, observações clínicas e pré-clínicas sugerem que terapia com sorafenib tem eficácia limitada devido ao rápido desenvolvimento de resistência ao fármaco. Portanto, elucidar mecanismo de resistência de escape a sorafenib é ênfase maior em pesquisa de CHC. Nos últimos anos, cada vez mais atenção tem sido dada ao papel de transição epitelial-mesenquimal (TEM) no progresso de CHC e desenvolvimento de resistência a fármacos. TEM refere-se à transformação de células epiteliais em mesenquimais, que confere às células capacidade de metastatizar e invadir, incluindo aquisição de características de células-tronco, redução de apoptose e envelhecimento, promoção de imunossupressão, e participação na ocorrência e desenvolvimento de câncer. A perda de expressão de E-caderina é considerada etapa chave na carcinogênese e TEM. TEM é um processo de reprogramação molecular e celular multi-etapa de desenvolvimento que células cancerígenas usam para alcançar agressividade. Isso é principalmente através de down-regulação da expressão de E-caderina, queratina, mucina, ZO-1 (proteína de junção apertada); up-regulação da expressão de vimentina, actina lisa alfa (α-SMA), FN fibronectina, MMPs (matriz de degradação), N-caderina, snail, slug, twist, Rho, TGF-β, FGF, colágeno tipo I, e colágeno tipo II para alcançar invasão, metástase, e anti-apoptose característicos de tumor TEM. As mudanças destas expressões de proteínas envolvem principalmente ativação das vias de sinalização Wnt/β-catenina e Ras/Raf/MAPK.
Nossos experimentos mostraram que anticorpo hGC33 na superfície do vetor NP pode inibir transdução de sinal β-catenina induzida por Wnt3a, e então down-regular expressão de β-catenina, CD44, fator de crescimento endotelial vascular (VEGF), ciclina D1, e c-MYC. Além disso, hGC33-SFB-NP inibe ativação da via de sinal Ras/Raf/MAPK e inibe proliferação e apoptose de células de CHC. hGC33 e SFB têm efeito sinérgico, inibindo TEM e diminuindo migração de células de CHC (Fig. 8).
hGC33-SFB-NP Inibe Crescimento de Carcinoma Hepatocelular In Vivo e Melhora Taxa de Sobrevida de Camundongos Portadores de Tumor
Para avaliar atividade antitumoral de hGC33-SFB-NP in vivo, células HepG2 e Huh-7 foram inoculadas subcutaneamente no abdômen direito e lado dorsal de camundongos nude fêmeas BALB/c, respectivamente. Quando o crescimento de xenotransplante tumoral atingiu cerca de 30 mm3, os camundongos foram aleatoriamente divididos em grupos para avaliar ainda mais inibição de cada grupo (hGC33-SFB-NP, hGC33-null-NP, SFB-NP, hGC33 livre, SFB livre, e grupo controle) efeito em CHC (n = 5 por grupo). Pode-se ver na Fig. 9a, b que hGC33-SFB-NP desacelerou significativamente crescimento tumoral em camundongos comparado com controle PBS e outros tratamentos. Comparado com controle PBS, hGC33-null-NP, SFB-NP, hGC33 livre, e SFB livre também tiveram alguma inibição de CHC, o que é porque hGC33 livre e SFB livre inibem diretamente sinal Wnt e Ras/Raf/MAPK, respectivamente. Tais vias podem inibir proliferação de células de CHC até certo ponto. Embora hGC33 modificado por nanopartículas (hGC33-null-NP) esteja conectado à nano-superfície através de ligações químicas, não afetou direcionamento de hGC33 a moléculas GPC3 e inibição de atividade Wnt. SFB carregado em nanopartículas (SFB-NP), após ser endocitado por células, foi degradado para liberar SFB do copolímero para inibir crescimento de CHC. Em tudo, efeito inibitório de hGC33-SFB-NP em enxertos de células HepG2 foi, como esperado, maior que em enxertos de células Huh-7, provavelmente porque HepG2 expressa moléculas GPC3.
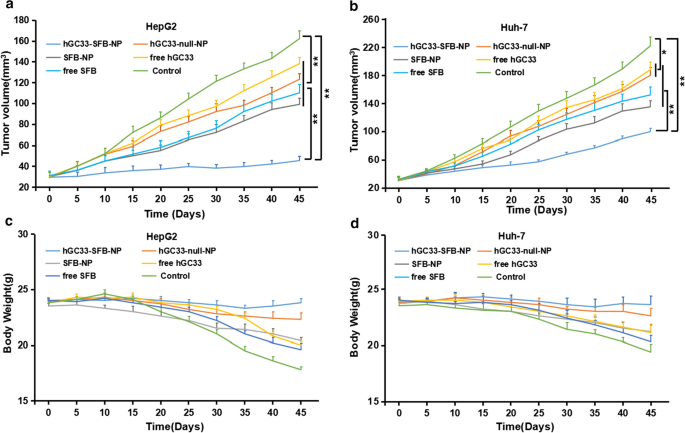
O peso corporal de camundongos nude em cada grupo de tratamento também foi medido, como mostrado na Fig. 9c, d. O peso corporal do grupo controle diminuiu gradualmente. O peso de camundongos nos grupos de tratamento hGC33 livre, SFB livre, SFB-NP, e hGC33-null-NP também diminuiu progressivamente e não significativamente menos que no grupo controle. No entanto, o peso de camundongos nude portadores de HepG2 e Huh-7 tratados com hGC33-SFB-NP apenas diminuiu ligeiramente, e o peso permaneceu relativamente estável durante o ciclo de tratamento. Estes resultados apoiam que o novo nanofármaco hGC33-SFB-NP não tem toxicidade significativa em camundongos nude, e o SFB carregado no nanocarregador e o hGC33 modificado na superfície podem produzir efeito antitumoral aditivo ou até sinérgico.
Discussão
Para examinar adequação de hGC33-SFB-NP para terapia direcionada de CHC, testamos os conjugados modelo para sua capacidade de ligar a glicpican-3 humano em células de CHC in vitro; inibir proliferação, migração e transdução de sinal Wnt/β-catenina de células de CHC glicpican-3-positivas; e inibir CHC que superexpressa glicpican-3 in vivo.
Para ligar covalentemente anticorpo hGC33 específico de GPC3 com nanopartículas mal-PEG-b-PLGA, ligamos cruzadamente grupo sulfidrilo livre no segmento Fc de hGC33 com PEG-b-PLGA funcionalizado com maleimida (mal-PEG-b-PLGA) formando ligações tioéter estáveis. Conjugação é pré-requisito para direcionamento de CHC GPC3-positivo. Uma série de experimentos, incluindo mudanças de diâmetro de nanopartícula e potencial zeta detectados por lente e captação intracelular de hGC33-SFB-NP, verificaram direcionamento de hGC33-SFB-NP a células HepG2 (GPC3+). Estes resultados indicaram que atividade de ligação de anticorpo hGC33 não foi alterada pela conjugação.
Detectamos diretamente efeito fagocítico de células HepG2 GPC3+ e Li-7 GPC3− em NPs PEG-b-PLGA modificadas na superfície com hGC33 por microscopia confocal. Após células HepG2 e Li-7 serem co-cultivadas com hGC33-cumarina 6-NP, a intensidade de sinal verde em células HepG2 foi significativamente maior que em células Li-7, indicando que havia mais nanopartículas nas células HepG2. Esta descoberta é consistente com anticorpo hGC33 modificado na superfície de NP PEG-b-PLGA ligando-se especificamente a glicpican-3 na superfície de células de CHC e sendo internalizado. A eficiência de internalização de NP modificada com hGC33 depende do nível de expressão de antígeno GPC3 na superfície celular.
Usamos ensaio MTT padrão para medir eficiência de inibição de proliferação de células de hepatoma. Tanto hGC33-null-NP quanto hGC33 inibiram crescimento da linhagem de células de CHC GPC3-positiva HepG2, mas hGC33-null-NP e hGC33 não afetaram proliferação de células Li-7 GPC3-negativas (Fig. 3b). No nível animal, hGC33-null-NP ou hGC33 sozinhos inibiram crescimento de xenotransplantes de Huh-7 e HepG2 até certo ponto, enquanto hGC33-SFB-NP causou parada de crescimento de xenotransplantes de hepatoma Huh-7 e HepG2 em camundongos. A descoberta de que hGC33-null-NP inibiu significativamente células de hepatoma GPC3-positivas mostrou que efeito inibitório de NP PEG-b-PLGA modificado na superfície com hGC33 em proliferação de células de CHC depende da expressão de antígeno GPC3 na superfície celular.
GPC3 regula muitas vias na patogênese de CHC, incluindo sinalização Wnt e YAP [25,26,27]. GPC3 interage com ligante Wnt e pode ser um co-receptor para Wnt e facilitar ligação Wnt/Frizzled para crescimento de CHC [28, 29]. Examinamos ainda efeito de nanofármaco modificado na superfície com hGC33 na via de sinalização Wnt em células de hepatoma. Como hGC33 livre, nanofármaco modificado na superfície com hGC33 inibiu proliferação de células de hepatoma não apenas bloqueando transdução de sinal induzida por Wnt em células HepG2 e Huh-7 expressando GPC3, mas também inibindo transdução de sinal β-catenina e YAP induzida por Wnt3a. Estudos prévios mostraram que expressão de YAP é regulada por β-catenina no nível transcricional de CHC [30, 31]. Neste estudo, hGC33 livre e nanofármaco modificado na superfície com hGC33 inibiram atividade YAP induzida por Wnt3a, indicando que Yap/TAZ liberado do complexo β-catenina também pode iniciar transdução de sinal Wnt clássica [32, 2]. Estes resultados indicam que Wnt típico e YAP conversam através de vários mecanismos. Comparado com hGC33-null-NP e hGC33, hGC33-SFB-NP teve maior capacidade anti-proliferação e anti-migração in vitro e in vivo. Assim, hGC33 não apenas determina especificidade de células de CHC, mas também aumenta efeito inibitório de SFB em proliferação e migração de células de CHC bloqueando sinais-chave relacionados ao crescimento tumoral, como vias de sinalização Wnt/β-catenina e Wnt/YAP.
Conclusão
Anticorpo hGC33 para glicpican-3, uma proteína de membrana superexpressa em células de carcinoma hepatocelular, aumentou ligação de nanopartículas de polímero polietileno glicol-b-PLGA carregadas com sorafenib (hGC33-SFB-NP) a glicpican-3 nas células cancerígenas. Administração das nanopartículas modificadas com anticorpo inibiu sinergicamente transdução de sinal induzida por Wnt e via de sinalização Ras/Raf/MAPK; células de carcinoma hepatocelular foram presas na fase G0/1 por down-regulação de expressão de ciclina D1, assim atenuando migração de células cancerígenas inibindo transição epitelial-mesenquimal. hGC33-SFB-NP inibiu crescimento de câncer de fígado in vivo e melhorou taxa de sobrevida de camundongos portadores de tumor.
Disponibilidade de Dados e Material
Sim, todos os dados foram apresentados no manuscrito.
Abreviações
- AKT/PKB:
- Proteína quinase B
- c-MET:
- HGFR: Receptor de fator de crescimento de hepatócitos
- EE%:
- Eficiência de encapsulamento %
- TEM:
- Transição epitelial-mesenquimal
- FTIR:
- Espectroscopia de infravermelho com transformada de Fourier
- 1H NMR:
- Espectroscopia de ressonância magnética nuclear de 1H
- CHC:
- Carcinoma hepatocelular
- LC%:
- Carga de fármaco %
- MAPK:
- Quinases de proteína ativadas por mitógeno
- IPD:
- Índice de polidispersidade
- PI3K:
- Fosfoinositídeo 3-quinase
- pRAD51:
- Fosfo-RAD51
- SFB:
- Sorafenib
- MET:
- Microscopia eletrônica de transmissão
- YAP:
- Proteína associada a Yes-1
Nanomateriais
- Terapia do Câncer Baseada em Nanopartículas: Avanços, Mecanismos e Tradução Clínica
- Nanopartículas de Espinélio FeMn₂O₄ Dopadas com Cobalto: Síntese com Controle de Tamanho e Comportamento Magnético
- Nanopartículas Metálicas: Potentes Inibidores de Bombas de Efluxo e Biofilmes para Restaurar a Eficácia Antibiótica
- Compósitos BiV1‑xMoxO4 com Nanopartículas de Prata: Desempenho Fotocatalítico Sinérgico sob Luz Visível
- Como a Rigidez Elástica e a Adesão Superficial Governam o Comportamento de Quicamento de Nanopartículas
- Avanços na Síntese e Aplicações de Nanoestruturas de Prata
- Nanopartículas PEG-CoFe₂O₄: Avaliação da Toxicidade e Efeito Protetor da Curcumina
- Influência do Ácido Peptizante na Composição de Fase de TiO₂ e Eficiência Fotocatalítica: Estudo Comparativo de Ácidos Sulfúrico, Nítrico e Acético
- Impacto do Tamanho e Concentração de Nanopartículas de Ouro no Desenvolvimento Radicular de Arabidopsis thaliana
- Síntese Verde de Nanopartículas de Óxido Metálico com Goma Karaya e Seu Impacto Ecotoxicológico em <i>Chlamydomonas reinhardtii</i>