



MicroRNA-18a de Macrófagos M2 Impulsiona Progressão do Carcinoma Nasofaríngeo ao Alvejar TGFBR3 na Via TGF-β
Resumo
Objetivos
O carcinoma nasofaríngeo (CNP) é um tipo de doença nasofaríngea com altas propriedades de metástase e invasão. Macrófagos associados ao tumor do tipo alternativamente ativados (M2) estão relacionados ao CNP. Baseado nisso, este estudo visa explorar o mecanismo e a participação do microRNA-18a (miR-18a) de macrófagos M2 no CNP.
Métodos
Células mononucleares do sangue periférico foram diferenciadas em macrófagos e polarizadas para tipo M2 por interleucina-4. Células SUNE-1 e CNE2 foram transfetadas com miR-18a restaurado ou depletado ou receptor III do fator de crescimento transformador beta (TGFBR3) para explorar seus papéis na progressão do CNP com envolvimento da via de sinalização TGF-β. Em seguida, células SUNE-1 e CNE2 foram co-cultivadas com macrófagos M2 tratados com miR-18a ou si-TGFBR3 restaurados ou depletados para compreender seus papéis combinados no CNP com envolvimento da via TGF-β.
Resultados
O miR-18a foi altamente expresso e o TGFBR3 foi baixamente expresso em células de CNP. A restauração do miR-18a, knockdown do TGFBR3 ou co-cultura com macrófagos M2 transfetados com miméticos de miR-18a ou si-TGFBR3 promoveram progressão de células SUNE-1, crescimento tumoral em camundongos, diminuíram p-Smad1/t-Smad1 e elevaram p-Smad3/t-Smad3. A downregulação do miR-18a, superexpressão do TGFBR3, ou co-cultura com inibidores de miR-18a ou macrófagos M2 transfetados com OE-TGFBR3 deprimiram progressão de células CNE2, crescimento tumoral em camundongos, aumentaram p-Smad1/t-Smad1 e diminuíram p-Smad3/t-Smad3.
Conclusão
Nosso estudo elucida que o miR-18a de macrófagos M2 resulta em progressão promovida de células de CNP e crescimento tumoral em camundongos nude via repressão do TGFBR3, junto com inativação da Smad1 e ativação da Smad3.
Introdução
O carcinoma nasofaríngeo (CNP) é um tumor epitelial maligno inclinado à infiltração local e metástase precoce à distância. Pacientes com CNP frequentemente apresentam paralisia do sexto nervo e síndrome de Horner. Atualmente, o tratamento aplicado consiste predominantemente em radioterapia, e radioterapia integrada e quimioterapia. Infelizmente, radioterapia e quimioterapia são inesperadamente acompanhadas por complicações, e a resistência adquirida à radioterapia prejudica os desfechos do CNP. Dado que a tarefa de investigar terapia alvo potencial é prioridade.
MicroRNAs (miRNAs) desregulados estão documentados como envolvidos na tumorigênese, metástase, invasão e resistência à radioterapia e quimioterapia do CNP. Como subfamília de miRNAs, o miR-18a facilita a progressão do CNP através da inibição do supressor de morfogênese em genitalia 1 e ativação da via mTOR. Além disso, o miR-18a ativa proliferação e metástase de células de CNP via regulação de DICER1. Adicionalmente, a progressão de células de CNP é impulsionada pelo miR-18a através de prejuízo da biogênese de miRNA. Além disso, o miR-18a funciona criticamente na metástase do CNP. Macrófagos alternativamente ativados (M2) são componentes importantes de malignidades sólidas e hematológicas e estão conectados com progressão, metástase e resistência à terapia. Macrófagos associados ao tumor polarizados M2 estão associados a mau prognóstico do CNP. É intrigantemente registrada a diferença de macrófagos M2 em CNP negativo e positivo para vírus Epstein-Barr. Existe estudo delineando que o miR-18a inibe metástase hepática de células de câncer de cólon induzindo macrófagos M1. O receptor III do fator de crescimento transformador beta (TGFBR3) é um co-receptor TGF-β que fornece ligante do receptor tipo II TGF-β para estimular sinalização e equilíbrio de superfície celular, e o TGFBR3 solúvel é regulador durante progressão do câncer. TGFBR3 baixamente expresso induz microambiente tumoral imunotolerante. Opostamente, superexpressão transitória de TGFBR3 induz apoptose em células humanas de CNP. Para nosso melhor conhecimento, polarização de macrófagos M2 induzida por miR-181a avança metástase de células tumorais mediada por macrófagos M2 via eixo fator 6 do tipo Kruppel-like e proteína α de ligação CCAAT/enhancer.
Coletivamente, embora muitos estudos tenham descoberto o papel independente do miR-18a, TGFBR3 e macrófagos M2 no CNP, as interações combinadas entre esses três fatores ainda são elusivas. Considerando isso, este estudo é lançado para decifrar os mecanismos e participação desses fatores no CNP.
Materiais e Métodos
Declaração Ética
O experimento foi aprovado pelo comitê de ética do Terceiro Hospital Xiangya, Universidade Central do Sul e atendeu aos padrões de ética médica. Este estudo foi conduzido com consentimento escrito de todos os doadores. Experimentos com animais estiveram em conformidade com os requisitos das regulamentações nacionais de gerenciamento e uso de animais de laboratório.
Coleta de Células Mononucleares do Sangue Periférico
Os monócitos foram obtidos do sangue periférico de doadores saudáveis pelo método de adesão. Espécimes de sangue periférico foram obtidos de doadores saudáveis do Departamento de Hematologia do Terceiro Hospital Xiangya, Universidade Central do Sul. Macrófagos derivados de monócitos foram obtidos através de adesão plástica de células mononucleares do sangue periférico (PBMCs) previamente isoladas por centrifugação em gradiente de densidade (Ficoll-Paque, GE Healthcare) de preparações de buffy coat de sangue de doadores saudáveis. Então, 2,0 × 10⁶ PBMCs foram cultivados em meio Dulbecco's Modified Eagle Medium (DMEM) suplementado com 10% soro humano (Millipore, Bedford, MA, EUA) e penicilina/estreptomicina em placas de 12 poços (NalgeNunc, NY, EUA). Quando PBMCs aderiram à parede por 2–3 h, o sobrenadante e PBMCs suspensos foram removidos repetidamente para obter monócitos aderentes.
Polarização de Macrófagos
Monócitos foram induzidos a diferenciar em macrófagos por fator estimulador de colônia de macrófagos humano (M-CSF) e polarizados em macrófagos M2 por interleucina (IL)-4.
Indução de Macrófagos
Monócitos foram cultivados em 20% soro fetal bovino (FBS)-DMEM e adicionado M-CSF (100 μg, Peprotech, NJ, EUA) à concentração final de 100 ng/mL. O meio foi renovado pela metade a cada 3 dias e então suplementado com 100 ng/mL M-CSF. Cultivados até o 7º–8º dia, parte das células foi colhida, e marcadores de superfície de macrófagos CD68, CD163 e CD206 foram testados por ensaio de imunofluorescência para identificar macrófagos.
Polarização de Macrófago
Macrófagos foram polarizados para M2 suplementando 20 ng/mL IL-4 (Peprotech) ao meio de diferenciação por mais 24 h. Parte das amostras de macrófagos M2 foi utilizada para detecção por citometria de fluxo. As amostras foram divididas em 3 tubos: tubo 1 era o mesmo lote de macrófagos aderentes sem estimulação por IL-4; tubos 2 e 3 eram macrófagos aderentes estimulados por IL-4. As amostras foram diluídas para cerca de 10.000 células ao carregar e adicionadas com imunoglobulina G inespecífica para bloquear o receptor Fc. Então as amostras foram adicionadas com anticorpo inespecífico de isotipo, anticorpo CD68 marcado com PE, e anticorpo CD163 marcado com PE (ambos da Biolegend, CA, EUA). Incubados por 30 min e lavados com 0,5% albumina sérica bovina em tampão fosfato salino (PBS), as amostras foram centrifugadas e transformadas em suspensão celular com 500 μL PBS para detecção.
Reação em Cadeia da Polimerase com Transcrição Reversa Quantitativa
RT-qPCR foi empregado para detectar expressão de miR-18a, CCL22, receptor γ ativado por proliferador de peroxissomo (PPAR-γ), e mRNA TGFBR3 nas células coletadas.
RNA total foi extraído de células por Trizol (Invitrogen, Carlsbad, CA, EUA) e transcrito reversamente em RNA complementar pelo Kit Mir-X miRNA First Strand Synthesis (Clontech, Mountain View, CA, EUA) para miR-18a e Kit PrimeScriptTM RT Master Mix (Takara, Dalian, China) para CCL22, PPAR-γ, e TGFBR3. U6 e gliceraldeído-3-fosfato desidrogenase (GAPDH) foram controles de carga para miR-18a, CCL22, PPAR-γ, e TGFBR3. SYBR®Premix Ex Taq™ II (Perfect Real Time) (Takara) em sistema LightCycler 480 II (Roche Diagnostics, Indiana, EUA) foi utilizado no PCR. Cálculo de dados foi avaliado pelo método 2−ΔΔCT. Primers de PCR foram apresentados na Tabela 1.
Ensaio Western Blot
Ensaio Western blot foi aplicado à detecção de TGFBR3, total (t)-Smad1, fosforilado (p)-Smad1, t-Smad3, e p-Smad3 proteína nas células coletadas.
Proteína total de células foi extraída e a concentração de proteína foi determinada baseada no kit de ácido bicinconínico. A amostra de proteína foi carregada nos poços em eletroforese em gel de poliacrilamida com dodecil sulfato de sódio e transferida para membrana de fluoreto de polivinilideno (PVDF). A membrana PVDF foi bloqueada com leite desnatado e incubada com anticorpos primários TGFBR3 (1:2000, R&D Systems, Minneapolis, MN, EUA), t-Smad1 (1:1000), p-Smad1 (1:1000, Santa Cruz Biotechnology), t-Smad3 (1:1000), p-Smad3 (1:1000), e GAPDH (1:1000, todos da Abcam, Cambridge, MA, UK) seguido por incubação com anticorpo secundário marcado com peroxidase de raiz-forte (1:500, Jackson ImmunoResearch Laboratories, PA, EUA). Lavada 3 vezes por tampão salino tris com Tween 20, a membrana foi desenvolvida por quimioluminescência aprimorada. Quantificação de sinais foi completada pelo Software de Análise de Processamento de Imagem ImageJ do National Institutes of Health com intensidade de sinal normalizada para GAPDH.
Cultura Celular e Triagem
Linhas de células humanas de CNP CNE2, TW03, C666-1, e SUNE-1 e linha normal de células nasofaríngeas humanas NP96 (Institutos de Xangai para Ciências Biológicas, Academia Chinesa de Ciências, Xangai, China) foram cultivadas em meio Roswell Park Memorial Institute (RPMI)-1640 (Gibco, CA, EUA) contendo FBS (Gibco), 100 μg/mL penicilina e 100 μg/mL estreptomicina e passadas a 80% de confluência. RT-qPCR foi utilizada para detectar expressão de miR-18a. Entre aquelas linhas de CNP, células CNE2 e SUNE-1 mostraram maior e menor diferença em expressão de miR-18a de células NP96, assim foram selecionadas para ensaios de downregulação ou upregulação de miR-18a.
Agrupamento e Tratamento Celular
Entre todas as linhas de CNP, células SUNE-1 com menor diferença de células NP96 em expressão de miR-18a foram selecionadas. Guiados por especificações de Lipofectamine 2000 (Invitrogen), células SUNE-1 foram transfetadas com miméticos de miR-18a, controle negativo (NC) de miméticos de miR-18a, si-TGFBR3, ou NC si-TGFBR3.
Entre todas as linhas de CNP, células CNE2 com maior diferença de células NP96 em expressão de miR-18a foram selecionadas e transfetadas com inibidores de miR-18a, NC inibidores de miR-18a, superexpressão (OE)-TGFBR3 ou NC OE-TGFBR3 por Lipofectamine 2000 (Invitrogen).
Guiados por especificações de Lipofectamine 2000 (Invitrogen), macrófagos M2 foram transfetados com miméticos de miR-18a, NC miméticos de miR-18a, si-TGFBR3, NC si-TGFBR3, inibidores de miR-18a, NC inibidores de miR-18a, OE-TGFBR3, ou NC OE-TGFBR3.
Co-cultura de Macrófagos M2 e Células de CNP
Co-cultura celular em câmara Transwell foi adotada para explorar efeitos de miRNA de macrófago M2 em células de CNP. A câmara superior foi preenchida com macrófago M2 com tamanho de poro 0,4 μm, que apenas impede células da câmara superior de passar, mas não moléculas pequenas secretadas pelas células como vesículas, fatores de crescimento, nutrientes, etc. A câmara inferior foi semeada com células de CNP.
Células SUNE-1 e CNE2 foram incubadas em FBS normal (Gibco). Células em fase de crescimento logarítmico foram adotadas para experimentos.
Células SUNE-1 e CNE2 foram co-cultivadas com macrófagos M2 em meio 10% FBS-RPMI-1640 (ambos da Gibco) em prato de cultura celular com inserto Transwell (Coring, Corning, NY, EUA) com tamanho de poro 0,4 μm.
Células SUNE-1 não foram co-cultivadas com macrófagos M2, ou co-cultivadas com macrófagos M2, macrófagos M2 transfetados com miméticos de miR-18a, NC miméticos de miR-18a transfetados, si-TGFBR3 transfetados, ou NC si-TGFBR3 transfetados.
Células CNE2 não foram co-cultivadas com macrófagos M2, ou co-cultivadas com macrófagos M2, macrófagos M2 transfetados com inibidores de miR-18a, NC inibidores de miR-18a transfetados, OE-TGFBR3 transfetados, ou NC OE-TGFBR3 transfetados.
Ensaio MTT
Viabilidade celular foi testada por ensaio 3-(4, 5-dimetiltiazol-2-il)-2, 5-difeniltetrazólio Brometo (MTT), ensaio colorimétrico aplicado para determinar atividade de desidrogenase mitocondrial, que reduziu MTT a formazan.
Tripsinizadas e semeadas em placas de 96 poços a 4 × 10⁴ células/poço, células foram privadas de meio de cultura no 0, 12º, 24º, 36º, e 48º h, respectivamente e suplementadas com solução MTT (500 μL, 0,5 g/L). Incubadas por 4 h, o sobrenadante foi descartado e células incubadas com 200 μL solução de dimetil sulfóxido. Valores de densidade óptica (DO, 490 nm) foram medidos em leitor de microplacas (ELX808IU, BioTek, VT, EUA). Cada grupo foi configurado com 6 poços paralelos.
Ensaio de Formação de Colônias
Capacidade de formação de colônias de células de CNP foi testada por ensaio de formação de colônias, que reflete dependência de população celular e proliferação clonal celular.
Cultivadas por 24 h e desprendidas com 0,25% tripsina, 300 células foram semeadas em prato de 35 mm com 3 poços paralelos em cada grupo. Com meio de cultura renovado a cada 3 dias, células foram cultivadas por uma semana e fixadas com 5 mL paraformaldeído 4%. Após isso, células foram coradas por solução de coloração violeta de cristal e secas ao ar. O prato foi invertido sobre o qual uma película transparente de grades foi sobreposta, e o número de colônias (mais de 50 células) foi contado sob microscópio (Olympus, Tóquio, Japão).
Teste de Arranhão
Migração celular foi testada por teste de arranhão. Células foram tripsinizadas, semeadas em placas de 6 poços com 3 poços paralelos para cada grupo, e cultivadas a 90% confluência. Então, células foram incubadas em meio com 2% FBS e arranhões verticais foram feitos por ponta de 100 μL. Células foram fotografadas no 0 e 24º h sob microscópio invertido para medir distância de migração celular.
Ensaio Transwell
Invasão e migração celular foram testadas por ensaio Transwell. A câmara superior da câmara Transwell foi pré-imersa e adicionada com 100 μL Matrigel (Coring) diluído por meio RPMI 1640 livre de soro a 1:100. Câmaras superior e inferior foram adicionadas com 200 μL e 600 μL meio RPMI 1640 livre de soro severamente. Subsequentemente, a câmara inferior foi adicionada com 600 μL meio RPMI 1640 contendo 10% FBS enquanto a superior com 200 μL suspensão celular (12,5 × 10⁴ células/mL). Incubadas por 40 h, células foram coradas por solução de coloração violeta de cristal e limpas com cotonete para contar células passando através do Matrigel sob microscópio.
Citometria de Fluxo
Apoptose celular e distribuição de ciclo celular foram determinadas por citometria de fluxo.
Distribuição de ciclo celular foi avaliada por coloração com iodeto de propídio (PI). Células foram semeadas em placas de 6 poços a 4 × 10⁵ células/poço, e cultivadas a 70–80% confluência. Fixadas em etanol 70% pré-resfriado durante a noite, células foram centrifugadas (sobrenadante descartado), adicionadas com RNAase (1 g/L, 200 μL) e Triton X-100 (2 μL), e coradas por solução de coloração PI por 30 min. Após isso, distribuição de ciclo celular foi detectada por citômetro de fluxo (BD Bioscience, NJ, EUA) a 488 nm de acordo com diferentes intensidades de fluorescência celular em cada fase (fase G0/G1, fase S, e fase G2/M).
Apoptose celular foi medida por dupla coloração Annexin V-fluoresceína isotiocianato (FITC) e PI. Células foram ressuspensas em 500 μL tampão de ligação e coradas por 5 μL solução de coloração Annexin V-FITC e 10 μL solução PI. Apoptose celular também foi testada por citômetro de fluxo (BD Bioscience) dentro de 30 min sem exposição à luz. No gráfico de dispersão, células vivas no quadrante inferior esquerdo (Q4) eram FITC⁻/PI⁻, células apoptóticas em estágio inicial no quadrante inferior direito (Q3) eram FITC⁺/PI⁻, e células necróticas e apoptóticas em estágio tardio no quadrante superior direito (Q2) eram FITC⁺/PI⁺. Taxa de apoptose = porcentagem de apoptose inicial (Q3) + porcentagem de apoptose tardia (Q2).
Xenoxertos Tumorais em Camundongos Nude
Crescimento tumoral foi observado estabelecendo modelo de CNP em camundongos nude. Desprendidas por 0,25% tripsina, células SUNE-1 e CNE2 em fase logarítmica foram configuradas em suspensão celular única a 5 × 10⁷ células/mL. A suspensão celular (0,2 mL) foi injetada na axila direita de camundongos por microinjetor para estabelecer modelos. Camundongos modelados foram criados em ambiente livre de patógenos específicos. Iniciado no 4º dia, crescimento tumoral foi observado e camundongos pesados a cada 4 dias. Camundongos nude foram eutanasiados no 20º dia após injeção e tumores ressecados, pesados por balança eletrônica e fotografados.
Ensaio de Reporter Luciferase Duplo
Sistema de reporter luciferase duplo foi adotado para confirmar sítios de ligação de miR-18a e região 3' não traduzida (UTR) de mRNA TGFBR3. Website de predição biológica (https://www.microrna.org/microrna/home.do) foi usado para analisar gene alvo de miR-18a, e descobrir existência de sítio de ligação complementar de miR-18a no 3'UTR de TGFBR3. Ensaio de reporter luciferase duplo foi empregado para verificar se TGFBR3 era diretamente alvejado por miR-18a. Um pmirGLO-TGFBR3-tipo selvagem (WT) e um pmirG-LO-TGFBR3-tipo mutante (MUT) de sítio de ligação 3'UTR de TGFBR3 foram construídos. TGFBR3-WT ou TGFBR3-MUT e miméticos de miR-18a ou NC miméticos foram co-transfetados em células SUNE-1 e CNE2 por Lipofectamine 2000 (Invitrogen) e incubados por 48 h. Kit de ensaio luciferase (Promega, Madison, WI, EUA) foi utilizado para analisar células.
Análise Estatística
Software estatístico SPSS21.0 (IBM Corp. Armonk, NY, EUA) foi usado para análise. Dados foram expressos como média ± desvio padrão. Diferenças entre dois grupos foram analisadas por teste t enquanto diferenças entre múltiplos grupos por análise de variância unidirecional (ANOVA), seguida por teste post hoc de Tukey. Diferença significativa foi considerada a P < 0,05.
Resultados
Identificação de Macrófagos M2
Monócitos enriquecidos por método de adesão e monócitos induzidos por M-CSF foram coletados do sangue periférico de doadores saudáveis. Detecção por imunofluorescência de CD68, CD206, e CD163 confirmou que PBMCs induzidos por M-CSF in vitro tornaram-se macrófagos com características moleculares típicas, que atenderam nossos requisitos (Fig. 1a).
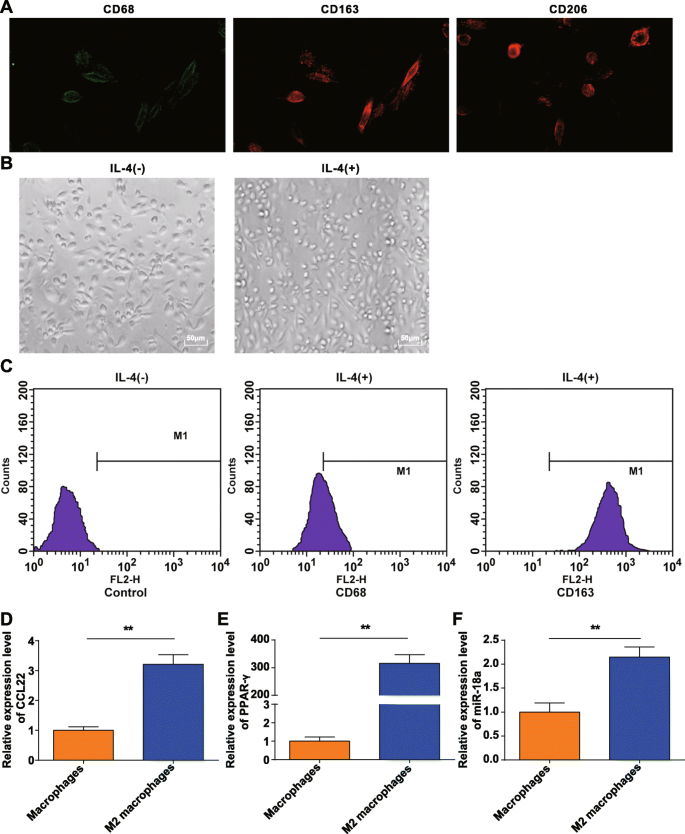
Macrófagos obtidos foram polarizados por IL-4 e observados sob microscópio para morfologia. Manifestou-se que macrófagos (M0) sem estimulação por IL-4 eram diversos e irregulares, mostrando forma redonda, oval, ou fusiforme. Estimulados por IL-4, macrófagos M2 tornaram-se maiores e predominantemente redondos, em conformidade com características morfológicas de M2 previamente descritas (Fig. 1b).
Citometria de fluxo testou antígenos de superfície de células aderentes estimuladas por 20 ng/mL IL-4 por 24 h e encontrou CD68 expresso a 21,16% enquanto CD163 a 98,69% do total de células (Fig. 1c), confirmando células aderentes como macrófagos M2. RT-qPCR revelou que, em contraste com células M0, CCL22 e PPAR-γ (moléculas típicas de polarização) aumentaram em macrófagos M2 (Fig. 1d, e), indicando indução bem-sucedida de macrófagos M2.
RT-qPCR também manifestou que expressão de miR-18a aumentou em macrófagos M2 em contraste com macrófagos M0 (P < 0,05) (Fig. 1f).
MiR-18a Altamente Expresso e TGFBR3 Pobremente Expresso em Células de CNP
Website de bioinformática (miRanda) predisse alvos potenciais de miR-18a e TGFBR3 foi considerado um alvo de miR-18a (Fig. 2a). Ensaio de reporter luciferase duplo foi implementado para verificar que miR-18a alvejava 3'UTR de TGFBR3. TGFBR3-WT ou TGFBR3-MUT foram clonados no vetor pmirGLO e co-transfetados com miméticos de miR-18a ou NC em células SUNE-1 e CNE2. Miméticos de miR-18a não influenciaram atividade luciferase de TGFBR3 3'UTR-MUT mas prejudicaram a de TGFBR3 3'UTR-WT em SUNE-1 e CNE2, sugerindo TGFBR3 como gene alvo regulado por miR-18a (Fig. 2b).
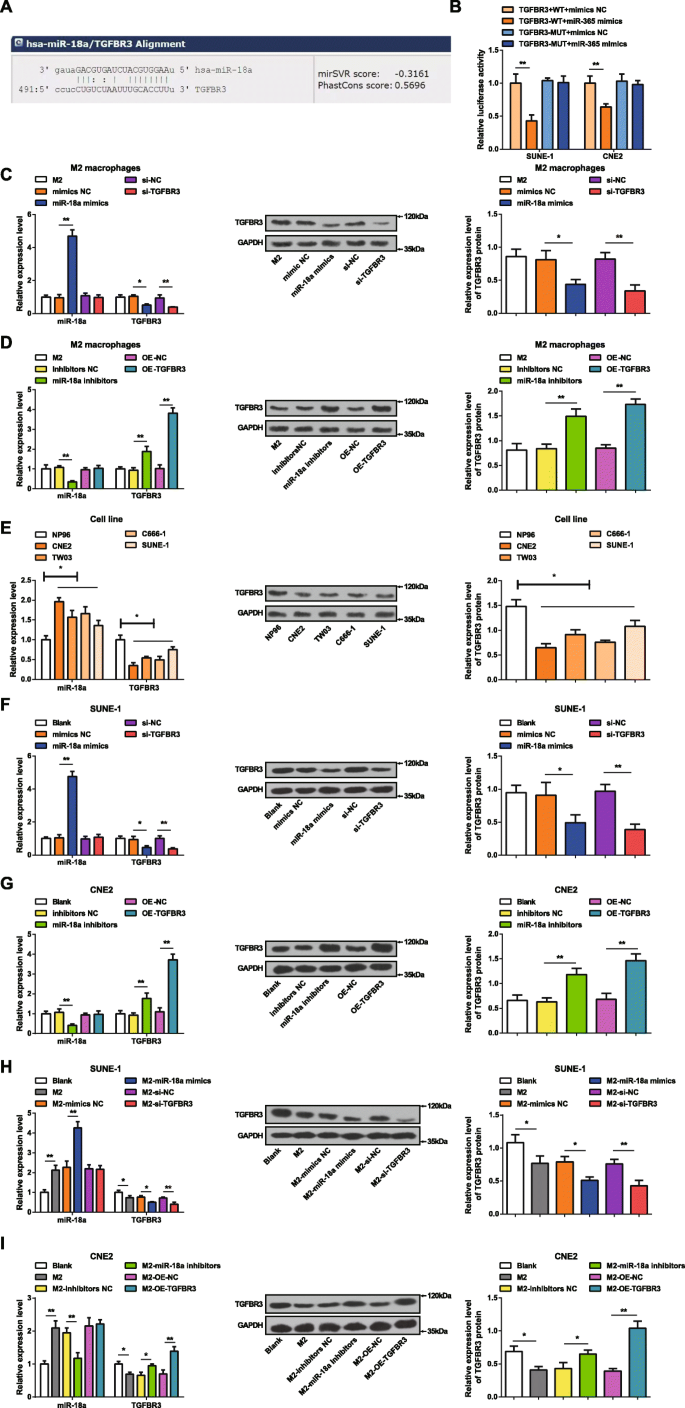
A eficiência de transfecção de miméticos de miR-18a ou inibidores de miR-18a em macrófagos M2 foi manifestada pela determinação de expressão de miR-18a e TGFBR3 em macrófagos M2 por RT-qPCR e Western blot. Foi óbvio que (Fig. 2c, d) superexpressão de miR-18a elevou expressão de miR-18a e reduziu expressão de TGFBR3 em macrófagos M2. Opostamente, inibição de miR-18a reduziu expressão de miR-18a e aumentou expressão de TGFBR em macrófagos M2. Nenhuma diferença foi testemunhada na expressão de miR-18a enquanto expressão de TGFBR3 diminuiu quando macrófagos M2 transfetados com si-TGFBR3. Nenhuma diferença foi testemunhada na expressão de miR-18a enquanto expressão de TGFBR3 cresceu na transfecção OE-TGFBR3 a macrófagos M2.
Expressão de miR-18a e TGFBR3 em linhas CNE2, TW03, C666-1, SUNE-1, e NP96 foram testadas por RT-qPCR e Western blot. Em células de CNP, em comparação com células NP96, expressão de miR-18a aumentou e expressão de TGFBR3 diminuiu (Fig. 2e). Devido a células CNE2 e SUNE-1 manifestarem maior e menor diferenças em expressão de miR-18a de células NP96, foram selecionadas para ensaios de downregulação e upregulação de miRNA, respectivamente.
Para identificar efeitos de miR-18a e TGFBR3 em células de CNP, células SUNE-1 foram transfetadas com miméticos de miR-18a ou si-TGFBR3 enquanto células CNE2 com inibidores de miR-18a ou OE-TGFBR3. RT-qPCR e Western blot demonstraram que miméticos de miR-18a elevaram expressão de miR-18a e reduziram expressão de TGFBR3 em células SUNE-1. Transfecção de si-TGFBR3 não teve efeito em expressão de miR-18a enquanto reduziu expressão de TGFBR3 em células SUNE-1. Inibidores de miR-18a diminuíram expressão de miR-18a e elevaram expressão de TGFBR3 em células CNE2. Transfecção OE-TGFBR3 em células CNE2 não afetou expressão de miR-18a mas elevou expressão de TGFBR3 (Fig. 2f, g).
Para explorar efeitos de miR-18a de macrófagos M2 em células de CNP, macrófagos M2 transfetados com miméticos de miR-18a ou si-TGFBR3 ou inibidores de miR-18a ou OE-TGFBR3 foram co-cultivados com SUNE-1 ou CNE2 em câmara Transwell, respectivamente. RT-qPCR e Western blot testaram expressão de miR-18a e TGFBR3 em SUNE-1 ou CNE2. Células SUNE-1 co-cultivadas com macrófagos M2 não transfetados ou transfetados com miméticos de miR-18a demonstraram expressão elevada de miR-18a e degradada de TGFBR3. Nenhuma diferença notada na expressão de miR-18a e TGFBR3 reduzida em células SUNE-1 que co-cultivaram com macrófagos M2 transfetados com si-TGFBR3 (Fig. 2h). Após co-cultura com macrófagos M2 não transfetados, células CNE2 apresentaram expressão aumentada de miR-18a e diminuída de TGFBR3. Porém, expressão reduzida de miR-18a e elevada de TGFBR3 apresentou em células CNE2 co-cultivadas com macrófagos M2 transfetados com inibidores de miR-18a. Nenhuma diferença reconhecida na expressão de miR-18a, e expressão de TGFBR3 aumentou em células CNE2 co-cultivadas com macrófagos M2 transfetados com OE-TGFBR3 (Fig. 2i).
MiR-18a de Macrófagos M2 Promove Viabilidade e Capacidade de Formação de Colônias de Células de CNP
Ensaio MTT e ensaio de formação de colônias foram aplicados para identificar impactos de miR-18a e TGFBR3 em viabilidade e capacidade de formação de colônias de células SUNE-1 e CNE2. Miméticos de miR-18a, inibidores de miR-18a, si-TGFBR3, ou OE-TGFBR3 foram transfetados em células SUNE-1 ou CNE2. Indicou-se que em células SUNE-1, upregulação de miR-18a ou downregulação de TGFBR3 aumentaram viabilidade celular e elevaram número de colônias (Fig. 3a, e). Em células CNE2, viabilidade celular foi prejudicada e número de colônias reduzido por inibição de miR-18a ou superexpressão de TGFBR3 (Fig. 3b, f).
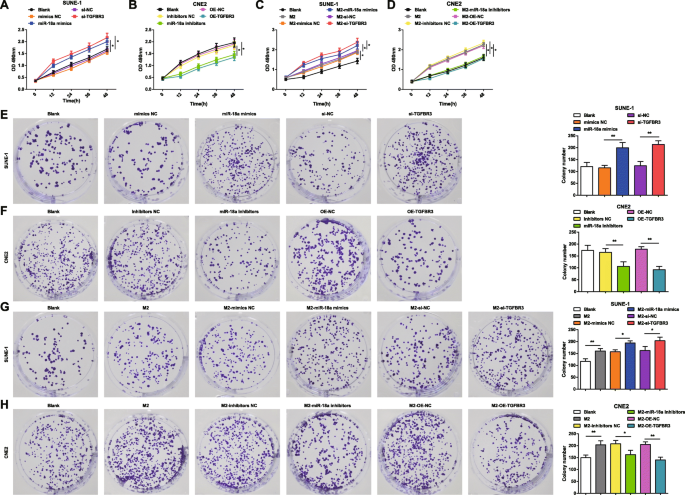
Para examinar efeitos de miR-18a de macrófago M2 em viabilidade e capacidade de formação de colônias de células de CNP, macrófagos M2 transfetados com miméticos de miR-18a, inibidores de miR-18a, si-TGFBR3, ou OE-TGFBR3 foram co-cultivados com SUNE-1 ou CNE2 em câmara Transwell. MTT e ensaio de formação de colônias exibiram que células SUNE-1 co-cultivadas com macrófagos M2 não transfetados, ou transfetados com miméticos de miR-18a ou si-TGFBR3 apresentaram viabilidade reforçada e número aumentado de colônias (Fig. 3c, g).
Células CNE2 co-cultivadas com macrófagos M2 não transfetados foram destacadas com viabilidade fortalecida e colônias aumentadas. Porém, células CNE2 co-cultivadas com macrófagos M2 transfetados com inibidores de miR-18a ou OE-TGFBR3 exibiram viabilidade diminuída e colônias decrescidas (Fig. 3d, h).
MiR-18a de Macrófagos M2 Promove Habilidades de Invasão e Migração de Células de CNP
Para melhor compreensão de como miR-18a e TGFBR3 afetaram migração e invasão de células de CNP, teste de arranhão e ensaio Transwell foram implementados. Resultados revelaram que células SUNE-1 transfetadas com miméticos de miR-18a ou si-TGFBR3 caracterizaram-se por distância de migração aumentada e células de invasão (Figs. 4a e 5a).
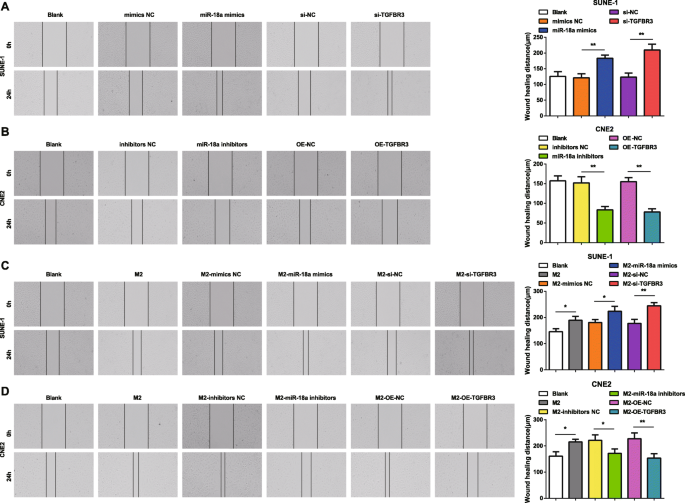
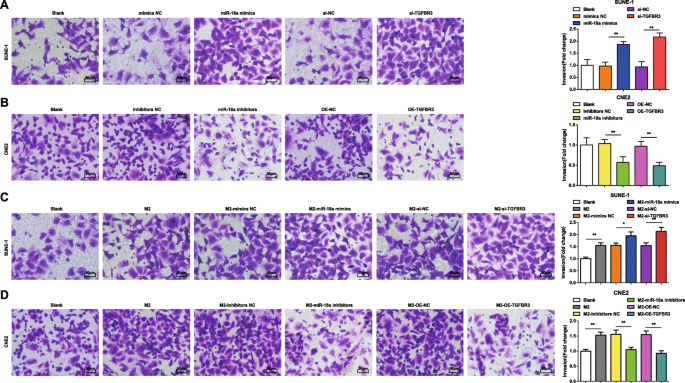
Em células CNE2 transfetadas com inibidores de miR-18a ou OE-TGFBR3, reduções apareceram em distância de migração e células de invasão (Figs. 4b e 5b).
Como miR-18a de macrófagos M2 influenciou habilidades de invasão e migração de células de CNP foi decifrado por macrófagos M2 transfetados com miméticos de miR-18a, inibidores de miR-18a, si-TGFBR3, ou OE-TGFBR3 co-cultivando com SUNE-1 ou CNE2. Resultados destacaram que células SUNE-1 co-cultivadas com macrófagos M2 não transfetados, ou transfetados com miméticos de miR-18a ou si-TGFBR3 manifestaram distância de migração aumentada e células de invasão (Figs. 4c e 5c).
Ambas distância de migração e células de invasão aumentaram em células CNE2 co-cultivadas com macrófagos M2 não transfetados. Na co-cultura com macrófagos M2 transfetados com inibidores de miR-18a ou OE-TGFBR3, células CNE2 mostraram distância de migração e células de invasão reduzidas (Figs. 4d e 5d).
MiR-18a de Macrófagos M2 Prende Menos Células de CNP na Fase G0/G1 e Suprime Apoptose
Distribuição de ciclo celular e apoptose foram testadas por citometria de fluxo para estratificar efeitos de miR-18a e TGFBR3 em células de CNP. Indicou-se que transfecção de miméticos de miR-18a ou si-TGFBR3 reduziu células SUNE-1 presas na fase G0/G1, aumentou células nas fases S e G2/M, e reduziu taxa de apoptose celular (Figs. 6a e 7a).
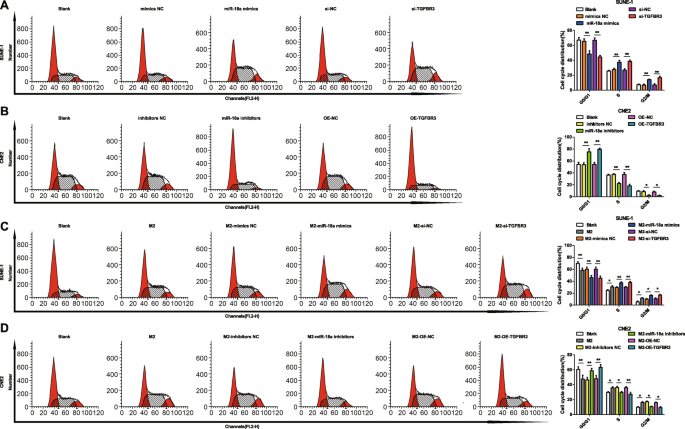
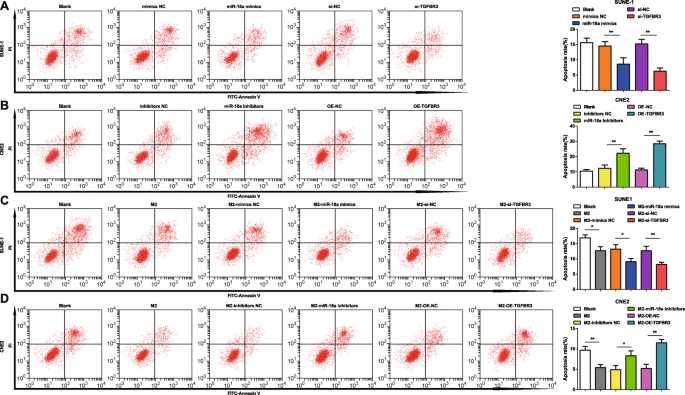
Na transfecção com inibidores de miR-18a ou OE-TGFBR3, células CNE2 na fase G0/G1 tenderam a elevar enquanto aquelas nas fases S e G2/M a reduzir, e taxa de apoptose aumentou (Figs. 6b e 7b).
Com propósito de decodificar mecanismo de miR-18a de macrófagos M2 em distribuição de ciclo celular e apoptose de células de CNP, macrófagos M2 transfetados com miméticos de miR-18a, inibidores de miR-18a, si-TGFBR3, ou OE-TGFBR3 foram co-cultivados com SUNE-1 ou CNE2 em câmara Transwell. Co-cultivadas com macrófagos M2 não transfetados, ou transfetados com miméticos de miR-18a ou si-TGFBR3, reduziu-se SUNE-1 na fase G0/G1 e aumentou células nas fases S e G2/M, e taxa de apoptose de SUNE-1 diminuiu (Figs. 6c e 7c).
Co-cultivadas com macrófagos M2 não transfetados, células CNE2 na fase G0/G1 reduziram, células nas fases S e G2/M aumentaram, e taxa de apoptose declinou. Ao contrário, co-cultivadas com macrófagos M2 transfetados com inibidores de miR-18a ou OE-TGFBR3, células CNE2 na fase G0/G1 elevaram enquanto aquelas nas fases S e G2/M diminuíram, e taxa de apoptose elevou (Figs. 6d e 7d).
MiR-18a de Macrófagos M2 Reduz p-Smad1/t-Smad1 e Eleva p-Smad3/t-Smad3 em Células de CNP
Ensaio Western blot detectou proteínas relacionadas à via de sinalização TGF em células de CNP para explicar efeitos de miR-18a e TGFBR3 na via TGF.
Explicou-se que transfecção de miméticos de miR-18a ou si-TGFBR3 reduziu p-Smad1/t-Smad1 e elevou p-Smad3/t-Smad3 em células SUNE-1 (Fig. 8a).
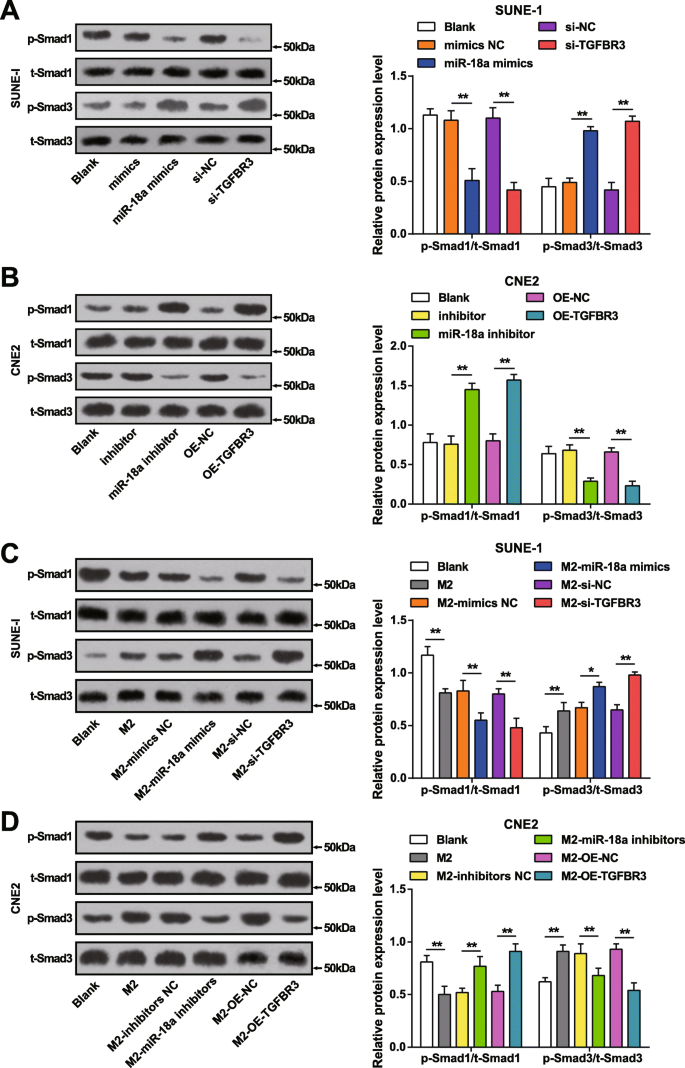
Transfecção com inibidores de miR-18a ou OE-TGFBR3 levou a p-Smad3/t-Smad3 declinado e p-Smad1/t-Smad1 aumentado em células CNE2 (Fig. 8b).
MiR-18a de macrófagos M2 influenciando via TGF em células de CNP foi determinado por Western blot através de teste de proteínas relacionadas à via TGF em SUNE-1 e CNE2 que co-cultivaram com macrófagos M2 transfetados com miméticos de miR-18a, inibidores de miR-18a, si-TGFBR3, ou OE-TGFBR3 em câmara Transwell.
Células SUNE-1 co-cultivadas com macrófagos M2 não transfetados, transfetados com miméticos de miR-18a, ou si-TGFBR3 manifestaram p-Smad1/t-Smad1 reduzido e p-Smad3/t-Smad3 incremental (Fig. 8c).
Co-cultivadas com macrófagos M2 não transfetados, células CNE2 tenderam a p-Smad1/t-Smad1 declinado e p-Smad3/t-Smad3 elevado. De modo oposto, células CNE2 demonstraram p-Smad1/t-Smad1 aumentado e p-Smad3/t-Smad3 diminuído quando co-cultivadas com macrófagos M2 transfetados com inibidores de miR-18a ou OE-TGFBR3 (Fig. 8d).
MiR-18a de Macrófagos M2 Induz Crescimento Tumoral em Camundongos Nude com CNP
Xenoxertos tumorais foram conduzidos em camundongos nude para elucidar impactos de miR-18a e TGFBR3 no crescimento tumoral de CNP.
Indicou-se que injetados com células SUNE-1 transfetadas com miméticos de miR-18a ou si-TGFBR3, camundongos manifestaram volume tumoral ampliado e maior peso tumoral (Fig. 9a).
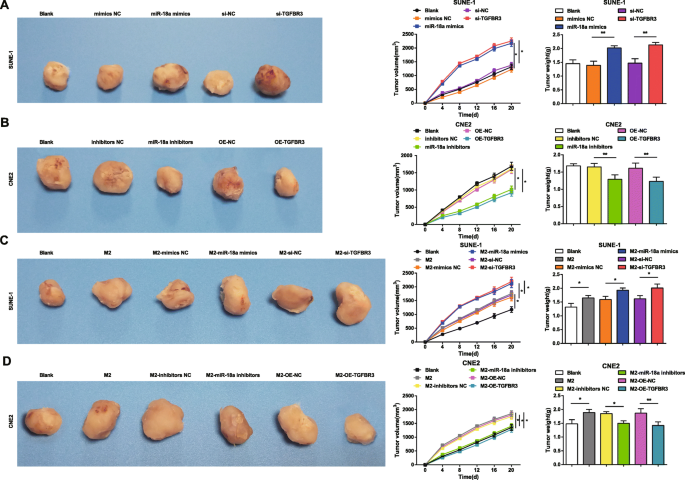
Volume e peso tumoral reduzidos apresentaram em camundongos com injeção de células CNE2 transfetadas com inibidores de miR-18a ou OE-TGFBR3 (Fig. 9b).
Crescimento tumoral observado em camundongos injetados com macrófagos M2 transfetados com miméticos de miR-18a, inibidores de miR-18a, si-TGFBR3, ou OE-TGFBR3 para ilustrar mecanismo de miR-18a de macrófagos M2 no CNP.
Após co-cultura com macrófagos M2 não transfetados, transfetados com miméticos de miR-18a ou si-TGFBR3, células SUNE-1 injetadas em camundongos observaram maior volume tumoral e maior peso tumoral (Fig. 9c).
Células CNE2 co-cultivadas com macrófagos M2 e injetadas em camundongos com resultados sugerindo volume e peso tumoral crescentes. Ambos volume e peso tumoral inclinaram a reduzir quando camundongos injetados com células CNE2 co-cultivadas com macrófagos M2 transfetados com inibidores de miR-18a ou OE-TGFBR3 (Fig. 9d).
Discussão
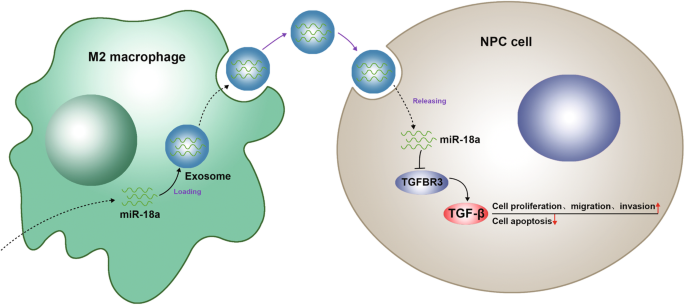
CNP refere-se a doença poligênica ameaçada por ampla gama de fatores. MiRNAs são previamente implicados na patogênese do CNP via regulação de seus genes alvo que são indicadores de processos e vias celulares. Concretamente, miR-18a avança progressão do CNP por prejuízo da biogênese de miRNA. Dado isso, este estudo avança para decifrar interações combinadas de miR-18a de macrófagos M2 e TGFBR3 no CNP com conclusão elucidando que miR-18a de macrófagos M2 estimula progressão do CNP via inibição de TGFBR3 (Fig. 10).
No início deste estudo, macrófagos são estimulados por IL-4 para diferenciar em macrófagos M2 que enriquecem expressão de miR-18a. Como sabemos, durante polarização de macrófagos, expressão de miRNA foi alterada. Além disso, polarização M2 enriquece genes envolvidos em ciclo celular e processos metabólicos, e fenótipo M2 é conducente a crescimento tumoral e angiogênese em tecidos neoplásicos. Baseado no miR-18a enriquecido em macrófagos M2, série de experimentos foi conduzida com sucesso.
Inicialmente, nosso estudo descobriu que miR-18a é altamente expresso enquanto TGFBR3 é pobremente expresso em células de CNP. Extraído de estudo prévio, conclui-se que miR-18a é superexpresso em tecidos de CNP com associação a metástase de linfonodo e estágio clínico. Além disso, membros do cluster miR-17-92 incluindo miR-18a são documentados como superexpressos em tecidos de CNP. Ademais, miR-18a upregulado demonstra em tecidos de CNP conectado com estágio de metástase de linfonodo tumoral e tamanho tumoral. Experimentalmente, exceto pelo TGFBR3 downregulado em carcinoma espinocelular de língua, houve outro estudo retratando TGFBR3 reduzido em carcinomas de células claras renais acompanhados por prognóstico indesejado. De qualquer forma, resultados neste estudo são consistentes com esses achados em certa medida.
Para explorar papéis de miR-18a e TGFBR3 em progressão de células de CNP, conduzimos série de ensaios com resultados indicando que miR-18a upregulado ou TGFBR3 downregulado gatilha progressão de células de CNP enquanto repressão de miR-18a ou elevação de TGFBR3 tem efeitos opostos em células de CNP. Amplamente, supressão de miR-18a é evidenciada para atrapalhar progressão celular em malignidades incluindo câncer ovariano, câncer colorretal associado a colite, e carcinoma hepatocelular. Restritamente, estudo existente pronunciou que miR-18a upregulado promove progressão de células de CNP via mediação de DICER1. Além disso, nota-se que miR-18a superexpresso em CNP conecta-se com metástase de CNP e miR-18a reprimido parcialmente contribui para melhor prognóstico de pacientes com CNP. Recentemente, pesquisou-se que downregulação de miR-18a é capaz de desencorajar proliferação, invasão, e migração de CNP. Adicionalmente, diminuição em expressão de TGFBR3 é tida como ligada a invasão de carcinoma espinocelular laríngeo (LSCC) e regulação do eixo miR-223/TGFBR3 participa em inibição de progressão de LSCC. Elevação de TGFBR3 documentada para restringir viabilidade de células de CNP, induzir apoptose, e ativar vias de sinalização pró-apoptose. Previamente, estudo indicou que upregulação de TGFBR3 promove apoptose e células presas na fase G2/M, resultando em viabilidade e migração prejudicadas em carcinoma cístico adenoide de glândula salivar. Intrigantemente, descrito anteriormente que indução de TGFBR3 contribui para desruptar progressão de colangiocarcinoma intra-hepático.
Apesar do papel protetor de miR-18a baixamente expresso e TGFBR3 superexpresso em células de CNP in vitro, realizamos xenoxertos tumorais em camundongos nude in vivo para verificação adicional com resultados explicando que knockdown de miR-18a ou elevação de TGFBR3 restringe crescimento tumoral em camundongos nude. Como demonstrado em estudo prévio, camundongos nude injetados com miR-18a mostram crescimento tumoral aumentado e, inversamente, camundongos nude injetados com antagomir de miR-18a exibem crescimento tumoral suprimido em CNP. Na luz da redução de TGFBR3 em crescimento tumoral, sugere-se que TGFBR3 pobremente expresso provoca formação tumoral em carcinoma de células claras renais. De modo oposto, aumento em TGFBR3 reconhecido para dificultar crescimento tumoral em câncer de pulmão com presença de RNA longo não-codificante ADAM metalopeptidase com motivo tipo trombospondina 1, 9 RNA antissenso 2 elevação, e supressão de miR-223-3p. Este estudo também predisse e verificou que TGFBR3 é gene alvo de miR-18a. Mas, mais estudos ainda precisam ser conduzidos para verificação adicional.
Conclusão
De modo geral, este estudo elabora mecanismos concretos que miR-18a de macrófagos M2 inibe expressão de TGFBR3 para exacerbar progressão do CNP via via de sinalização TGF-β, cujos resultados são revertidos por knockdown de miR-18a ou elevação de TGFBR3. Este estudo atualiza alvo terapêutico para CNP. Porém, pesquisas de grande coorte ainda são necessárias para explorações aprofundadas.
Disponibilidade de Dados e Materiais
Não aplicável.
Abreviações
- CNP:
- Carcinoma nasofaríngeo
- miRNA:
- MicroRNA
- TGFBR3:
- Receptor III do fator de crescimento transformador beta
- TGF-β:
- Fator de crescimento transformador beta
- M-CSF:
- Fator estimulador de colônia de macrófagos
- IL-4:
- Interleucina-4
- PBMCs:
- Células mononucleares do sangue periférico
- FBS:
- Soro fetal bovino
- DMEM:
- Dulbecco's Modified Eagle Medium
- RT-qPCR:
- Reação em cadeia da polimerase com transcrição reversa quantitativa
- GAPDH:
- Gliceraldeído-3-fosfato desidrogenase
- PVDF:
- Fluoreto de polivinilideno
- RPMI:
- Roswell Park Memorial Institute
- MTT:
- 3-(4,5-dimetiltiazol-2-il)-2,5-difeniltetrazólio brometo
- PI:
- Iodeto de propídio
- FITC:
- Fluoresceína isotiocianato
- WT:
- Tipo selvagem
- MUT:
- Tipo mutante
- UTR:
- Região não traduzida
- NC:
- Controle negativo
- OE:
- Superexpressão
- si:
- RNA interferente pequeno
- FC:
- Resfriamento em campo
- ZFC:
- Resfriamento em campo zero
- Tb:
- Temperatura de bloqueio
Nanomateriais
- Nanocompósitos Híbridos Núcleo-Casca Celulose-POSS-Sílica/Ouro: Síntese Sol-Gel em Uma Etapa e Propriedades Multifuncionais
- Lipossomos PEGilados Melhoram a Solubilidade, Farmacocinética e Citotoxicidade em Glioma da Bufalina
- Nanoesferas Poliméricas Impressas com Íon Paládio(II) para Remoção Eficiente de Pd(II) da Água
- Nanopartículas de Ácido 5-Aminolevulínico-Esqualeno com Alta Carga: Fotodetecção e Terapia de Tumor Aprimoradas em Modelos Celulares
- Nanopartículas de Ouro Modificadas com 6-Mercaptopurina e Peptídeo Derivado do Vírus da Raiva Aumentam Proliferação e Crescimento de Neuritos em Células Neurais SH-SY5Y
- Nanopartículas de Maguemita Melhoram Crescimento e Tolerância à Seca em Brassica napus Atuando como Nanoenzimas
- Fe³⁺-Enxertado BiOCl Otimizado para Adsorção Rápida de Corantes Catiônicos e Aniônicos Traço em Águas Residuais
- Pontos Quânticos de Carbono Fluorescentes Brilhantes a Partir de Suco de Limão: Síntese Hidrotérmica e Caracterização Óptica
- Síntese MOCVD Auto-Semeada de Nanofios Core-Shell InGaAs/InP: Fotoluminescência Superior e Crescimento Controlado por Deformação
- Nanopartículas de Fe₃O₄ Modificadas com APTES Entregam Oligodesoxinucleotídeos CpG, Melhorando Imunoterapia Tumoral e Prevenindo Metástase